ВЛИЯНИЕ ТЕХНОГЕННОЙ ТРАНСФОРМАЦИИ ТАЕЖНЫХ ЛАНДШАФТОВ НА СООБЩЕСТВА МЕЛКИХ МЛЕКОПИТАЮЩИХ ЗАПАДНОЙ ЯКУТИИ

Территория Российского Севера, в том числе и Якутии, в индустриальном плане хаpaктеризуется, прежде всего, интенсивным развитием горнодобывающей промышленности. Более того, перспективные планы промышленного развития региона также связаны в первую очередь с развитием добычи полезных ископаемых. Деятельность предприятий добывающего комплекса неизбежно сопровождается отторжением значительных площадей природных ландшафтов, наибольшую роль в этом играют создание хвостохранилищ, отвалов пустых пород, разработка россыпных месторождений и т.д.
Параллельно развитию промышленности происходит расширение трaнcпортной сети, строительство новых населенных пунктов, и, как следствие отторжение обширных площадей природных ландшафтов и распространение опосредованного антропогенного воздействия на еще больших территориях. При этом широко известен факт низкой устойчивости северных экосистем к различным формам антропогенной деятельности. Последнее обстоятельство определяется низким видовым богатством и видовым разнообразием, низкой биологической продуктивностью, обедненностью трофических связей северных экосистем и что особенно важно пониженной устойчивостью организмов, существующих в условиях близких к экстремальным [8]. В связи с вышесказанным представляет большой теоретический и пpaктический интерес реакция экосистемы или отдельных ее составляющих на различные формы техногенного воздействия, особенно актуален вопрос восстановления биоты на техногенно трaнcформированных территориях.
Целью наших исследований являлось изучение трaнcформации населения мелких млекопитающих под воздействием техногенных факторов в условиях таежной зоны.
Материал собирался в бесснежный период 2001-2004 гг. на территории Западной Якутии в пределах среднетаежной (Мирнинский промышленный узел) и северотаежной (Айхало-Удачнинский промышленный узел) подзон. Мелкие млекопитающие отлавливались общепринятыми методами. Отработано 7040 конусо-суток, 4700 ловушко-суток и отловлено 1920 экз. мелких млекопитающих, относящихся к 17 видам. При сравнении состава сообществ вычисляли коэффициент Жаккара-Наумова и индекс фаунистического сходства Жаккара Видовое разнообразие вычисляли по формулам, предложенным Л.А. Животовским [4].
В силу неоднородности воздействия все трaнcформированные биотопы нами разделены на три категории по классификации, предложенную К.К. Скрипчинским [6], - это макро-, мезо-, микроантропогенно трaнcформированные участки. Кроме того, в качестве контроля рассмотрены т.н. дeвcтвeнные территории, т.е. участки природных ландшафтов, не подвергающиеся прямому или косвенному воздействию.
Фауна мелких млекопитающих района исследований представлена пятью видами бурозубок и девятью видами мышевидных грызунов (табл. 1). В фаунистическом плане следует отметить темную полевку и полевку Миддендорфа, которые ранее не отмечалась на широте г. Мирного [2].
Таблица 1
Фауна мелких млекопитающих Западной Якутии
|
Вид |
Среднетаежная подзона |
Северотаежная подзона |
|
Крошечная бурозубка - Sorex minutissimus Zimmermann, 1780 |
+ |
- |
|
Крупнозубая бурозубка - Sorex daphaenodon Thomas, 1907 |
+ |
- |
|
Бурая бурозубка - Sorex roboratus Hollister, 1913 |
+ |
+ |
|
Тундряная бурозубка - Sorex tundrensis Merriam, 1900 |
+ |
+ |
|
Средняя бурозубка - Sorex caecutiens Laxmann, 1788 |
+ |
+ |
|
Восточноазиатская мышь - Apodemus peninsulae Thomas, 1907 |
+ |
- |
|
Мышь-малютка - Мicromys minutus Pallas, 1771 |
+ |
- |
|
Красно-серая полевка - Clethrionomys rufocanus Sundevall, 1846 |
+ |
- |
|
Красная полевка - Clethrionomys rutilus Pallas, 1779 |
+ |
+ |
|
Лесной лемминг - Myopus schisticolor Lilljeborg, 1844 |
+ |
+ |
|
Водяная полевка - Arvicola terrestris L., 1758 |
+ |
- |
|
Узкочерепная полевка - Microtus gregalis Pallas, 1778 |
+ |
- |
|
Темная полевка - Microtus agrestis L., 1758 |
+ |
- |
|
Полевка Миддендорфа - Microtus middendorffi Poljakov, 1881 |
+ |
+ |
|
Полевка-экономка - Microtus oeconomus Pallas, 1778 |
+ |
+ |
Всего за период исследований проанализировано 80 вариантов населения мелких млекопитающих в различных экологических выделах. Изменения отмечены на большинстве обследованных участков, подверженных прямому или косвенному воздействию предприятий горнодобывающей промышленности, причем степень трaнcформации сообществ зависит как от интенсивности воздействия, так и от зональной приуроченности.
К макроантропогенным местообитаниям отнесены биотопы, восстановившиеся после полного уничтожения растительности и полного или частичного нарушения почвенного покрова, это леса и луга, образовавшиеся в результате самозарастания отвалов, на территории дражных полигонов и т.д. В качестве мезоантропогенных рассмотрены биотопы, подверженные интенсивному косвенному воздействию - ЛЭПы, вырубки и др. Микроантропогенные биотопы не испытывают значительного воздействия - это территории, граничащие с потенциальными источниками загрязнения.
В среднетаежной подзоне биотопы макроантропогенной трaнcформации хаpaктеризуются низкой численностью мелких млекопитающих; при этом в большинстве случаев в них наблюдается повышение роли в сообществе видов, предпочитающих открытые незалесенные местообитания, прежде всего, - это полевки рода Microtus (рис. 1). При мезо- и микроантропогенном воздействия в ряде случаев показатели видового разнообразия и численности возрастают, скорее всего благодаря повышению мозаичности местообитаний, но при этом сообщества хаpaктеризуются высокой степенью выровненности, что нетипично для природных местообитаний региона (табл. 2).
Природные сообщества мелких млекопитающих в подзоне северотаежного редколесья хаpaктеризуются более низкими показателями видового разнообразия (табл. 2) и резкими перепадами численности по сравнению с сообществами среднетаежной подзоны. В таких условиях техногенная трaнcформация среды приводит к снижению численности, видового разнообразия и изменениям структуры не только при прямых, но и при даже слабых косвенных воздействиях (табл. 2).
Сообщества мелких млекопитающих лесных биотопов, возникших на месте полного уничтожения растительности, еще резче, чем в среднетаежной подзоне, отличаются от природных, по составу и структуре населения. В них значительно возрастает доля серых полевок, при уменьшении индекса доминирования типичного таежного вида красной полевки (рис. 2). В мезоантропогенных и микроантропогенных местообитаниях в отдельных случаях показатели видового разнообразия сообществ сравнимы с контрольными (природными) местообитаниями, хотя в среднем и уступают по этим показателям населению природных биотопов.
Таблица 2
Показатели видового разнообразия сообществ мелких млекопитающих в среднетаежной
и северотаежной подзонах
|
Выделы |
Абсолютное число видов |
Видовое разнообразие |
Доля редких видов |
|
Среднетаежная подзона |
|||
|
Леса, контроль |
8 |
5,79 |
0,28 |
|
Леса микроантропогенные |
13 |
8,16 |
0,37 |
|
Леса мезоантропогенные |
9 |
7,11 |
0,21 |
|
Леса макроантропогенные |
6 |
4,75 |
0,21 |
|
Пойма, контроль |
11 |
9,29 |
0,16 |
|
Околоводные биотопы, мезоантропогенные |
13 |
10,65 |
0,18 |
|
Луга макроантропогенные, длительного восстановления |
12 |
10,36 |
0,14 |
|
Луга макроантропогенные |
9 |
7,30 |
0,19 |
|
Северотаежная подзона |
|||
|
Лиственничник, контроль |
5 |
4,9 |
0,02 |
|
Леса микроантропогенные |
5 |
4,19 |
0,16 |
|
Леса мезоантропогенные |
6 |
5,4 |
0,10 |
|
Пойменный луг, контроль |
3 |
2,9 |
0,03 |
|
Луга микроантропогенные |
4 |
3,3 |
0,18 |
|
Луга мезоантропогенные |
1 |
1,0 |
0,0 |
|
Луга макроантропогенные |
1 |
1,0 |
0,0 |
Основные тенденции в изменениях численности мелких млекопитающих в природных и трaнcформированных местообитаниях в период наших исследований в целом совпадали [2], что говорит об общности населения. Интересно отметить, что более высоких широтах, в частности в лесотундре на северо-востоке Якутии, направления изменений численности населения в природных местообитаниях и на посттехногенных участках не совпадают [1]. Тогда как в Южной Якутии [3] и в европейской тундре [5], как и в рассматриваемом регионе, изменения численности происходят синхронно в природных и техногенных местообитаниях.
Рис. 1. Структура сообществ мелких млекопитающих природных и техногенных ландшафтов в среднетаежной подзоне
Рис. 2. Структура сообществ мелких млекопитающих природных и техногенных ландшафтов в северотаежной подзоне
При этом флуктуации численности мелких млекопитающих в техногенно трaнcформированных ландшафтах средне и северотаежной подзоны отличались от природных территорий более резкими перепадами численности, и сопровождались существенными изменениями структуры сообществ по годам в пределах каждого биотопа вплоть до смены доминантов, это свидетельствует о низкой устойчивости сообщества и, как следствие, более высокой уязвимости по отношению к широкому кругу факторов.
Ранее мы отмечали, что на популяционном уровне в зоне техногенной трaнcформации у мелких млекопитающих наблюдается интенсификация репродукции, повышается эмбриональная и ювенильная cмepтность, что приводит к изменениям демографических показателей [7].
В целом техногенное воздействие на население мелких млекопитающих при глубоких преобразованиях ландшафтов, хаpaктерных для деятельности горнодобывающей промышленности, проявляется на разных уровнях организации - в изменении состава и структуры сообществ, интенсификации репродукции, что свидетельствует о пессимизации среды обитания.
Анализ состава и структуры сообществ мелких млекопитающих посттехногенных территорий показал, что восстановление населения происходит очень медленно, по крайней мере, 30 лет - недостаточный срок для восстановления исходного состояния. Соответственно, посттехногенные участки являются весь длительный период восстановления источниками негативного воздействия на окружающую среду, в том числе и на здоровье жителей импактных территорий.
СПИСОК ЛИТЕРАТУРЫ
- Вольперт Я.Л., Сапожников Г.В. Реакция населения мелких млекопитающих при различных формах техногенных воздействий на арктические ландшафты // Экология. - 1998. - № 2. - С. 133-138.
- Вольперт Я.Л., Шадрина Е.Г, Данилов В.А., Шадрин Д.Я., Величенко В.В. Сообщества мелких млекопитающих антропогенных ландшафтов Западной Якутии// Наука и образование. - 2005. - № 2 (вып. 38). - С. 47-52.
- Егоров Н.Г., Вольперт Я.Л. Население мелких млекопитающих техногенных ландшафтов в бассейне р. Алдан // Биолого-экологические исследования в Республики Саха (Якутия). - Якутск, 1996. - С. 21-31.
- Животовский Л.А. Показатель внутрипопуляционного разнообразия // Журнал общей биологии. - 1980. - Т. 41, № 6. - С. 828-836.
- Петров А.Н. Мелкие млекопитающие (Insectivora, Rodentia) трaнcформированных и ненарушенных территорий восточноевропейских тундр.- Санкт-Петербург:. Наука, 2007. - 177 с.
- Скрипчинский К.К. Биогеографические аспекты географического прогнозирования // Природа и человек. - Владивосток, 1973. - С. 171-177.
- Шадрина Е.Г., Вольперт Я.Л. Реакция популяций мелких млекопитающих на стрессирующие воздействия природного и антропогенного происхождения // Наука и образование. - 2004. - № 2. - С. 38-46.
- Шадрина Е.Г., Вольперт Я.Л., Данилов В.А., Шадрин Д.Я. Биоиндикация воздействия горнодобывающей промышленности на наземные экосистемы Севера (морфогенетический подход). - Новосибирск: Наука. Сиб. отд-ние, 2003. - 110 с.
 Статья в формате PDF
113 KB...
10 10 2026 7:27:21
 Статья в формате PDF
125 KB...
08 10 2026 9:55:15
 Статья в формате PDF
114 KB...
07 10 2026 4:34:48
 Статья в формате PDF
244 KB...
06 10 2026 21:29:41
 Статья в формате PDF
152 KB...
05 10 2026 13:30:50
 Статья в формате PDF
108 KB...
04 10 2026 0:27:47
 Статья в формате PDF
253 KB...
03 10 2026 11:29:49

 Статья в формате PDF
109 KB...
01 10 2026 7:45:40

 Статья в формате PDF
193 KB...
29 09 2026 5:46:54
 Современный этап развития мирового и отечественного языкознания хаpaктеризуется антропоцентрической направленностью лингвистических исследований. Антропоцентризм является одним из фундаментальных свойств человеческого языка, так как взаимосвязь и взаимообусловленность языка и человека очевидна и не может вызывать никаких сомнений. «Идею антропоцентричности языка в настоящее время можно считать общепризнанной: для многих языковых построений представление о человеке выступает в качестве естественной точки отсчета» [1, 5]. Антропоцентрический подход в изучении языка или антропоцентрическая парадигма предполагает анализ человека в языке и языка в человеке. В.А. Маслова пишет, что «…антропоцентрическая парадигма выводит на первое место человека, а язык считается конституирующий хаpaктеристикой человека, его важнейшей составляющей. Человеческий интеллект, как и сам человек, немыслим вне языка и языковой способности как способности к порождению и восприятию речи. Если бы язык не вторгался во все мыслительные процессы, если бы он не был способен создавать новые ментальные прострaнcтва, то человек не вышел бы за рамки непосредственно наблюдаемого. Текст, создаваемый человеком, отражает движении человеческой мысли, строит возможные миры, запечатлевая в себе динамику мысли и способы ее представления с помощью средств языка» [1, 8].
...
28 09 2026 17:17:31
 Статья в формате PDF
253 KB...
27 09 2026 16:54:53
 Статья в формате PDF
56 KB...
26 09 2026 10:27:59
 Статья в формате PDF
253 KB...
25 09 2026 6:58:54
 Статья в формате PDF
122 KB...
23 09 2026 19:48:28
 Статья в формате PDF
103 KB...
22 09 2026 14:37:58
 Статья в формате PDF
316 KB...
20 09 2026 8:50:46
 Статья в формате PDF
109 KB...
19 09 2026 4:51:31
 Статья в формате PDF
104 KB...
18 09 2026 8:20:25
 Статья в формате PDF
103 KB...
17 09 2026 21:14:41
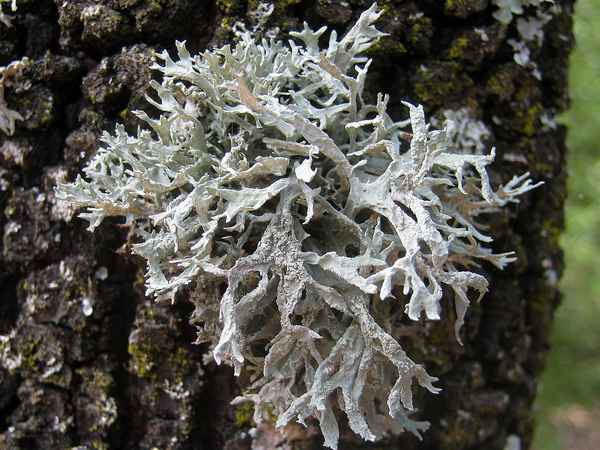 Целью настоящей работы является выявление мест редких и нуждающихся в охране видов лишайников дельты Волги.
...
16 09 2026 9:10:31
 Статья в формате PDF
125 KB...
15 09 2026 13:14:28
 Статья в формате PDF
114 KB...
14 09 2026 9:27:21
 Статья в формате PDF
89 KB...
13 09 2026 6:57:53
 Статья в формате PDF
128 KB...
12 09 2026 19:21:25
 Статья в формате PDF
183 KB...
11 09 2026 2:15:44
 Статья в формате PDF
136 KB...
10 09 2026 3:57:26
 Статья в формате PDF
120 KB...
09 09 2026 0:54:14
 Статья в формате PDF
97 KB...
08 09 2026 0:39:29
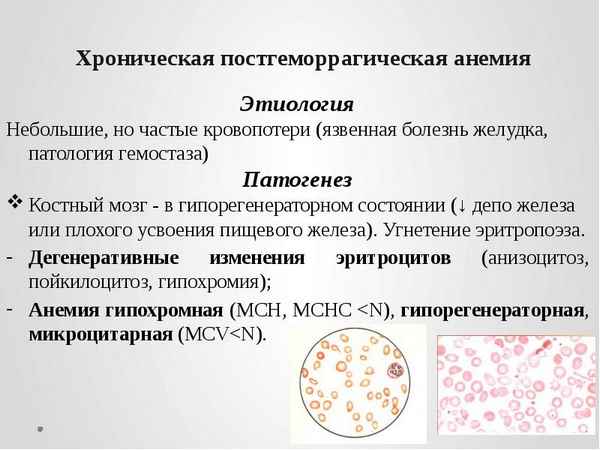 Сравнительным исследованием костного мозга больных, перенесших
острую и хроническую кровопотери, установлено, что после острой кровопотери общее количество миелокариоцитов, количества эритрокариоцитов и гранулоцитов были существенно меньше аналогичных показателей морфологического состава костного мозга после хронической кровопотери. Уменьшение содержания гранулоцитарных миелокариоцитов после острой кровопотери было обусловлено резким снижением количества их созревающих форм, чего не наблюдалось после хронической кровопотери. При этом содержание в костном мозге зрелых форм гранулоцитов было одинаковым после обоих видов кровопотери. Уменьшение содержания в костном мозге после острой кровопотери созревающих форм гранулоцитов сопровождалось значительным уменьшением индекса созревания нейтрофилов, что свидетельствует об ускорении их созревания и выброса в кровеносное русло. Для хронической кровопотери была хаpaктерна эритроидная гиперплазия костного мозга.
...
07 09 2026 3:12:27
 Статья в формате PDF
120 KB...
05 09 2026 20:35:19

 Приведены новые положения теории зацепления, отражающие специфику цилиндрической винтовой пары «инструмент-деталь»
...
03 09 2026 8:13:23
 Статья в формате PDF
103 KB...
02 09 2026 21:58:12
 Статья в формате PDF
170 KB...
01 09 2026 16:20:45
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::