МОЛЕКУЛЯРНО-ГЕНЕТИЧЕСКИЕ И СТРУКТУРНЫЕ ОСНОВЫ АУДИОГЕННОЙ ЧУВСТВИТЕЛЬНОСТИ КРЫС С АБСАНСНОЙ ЭПИЛЕПСИЕЙ

В работе на созданных молекулярно-генетических моделях выявлена ассоциация генотипа А2/А2 локуса TAG 1A гена рецептора дофамина второго типа крыс с повышенной аудиогенной чувствительностью и увеличением удельной площади базолатеральной группировки миндалевидного комплекса по сравнению с крысами А1/А1.
Статья в формате PDF 125 KBЭпилепсия является одним из наиболее распространенных неврологических заболеваний, имеет сложный полигенный хаpaктер и осложнена тем, что 30% пациентов резистентны к фармакотерапии. В настоящее время известен очень небольшой список генов, единичные мутации которых приводят к эпилепсии [18]. Много неясного в этиологии и патогенезе этого заболевания. Поэтому понимание биологических механизмов патогенеза и фармакорезистентности эпилепсии является актуальной задачей биологической психиатрии, невозможной без использования экспериментальных моделей [8]. В отношении эпилепсии эта задача облегчается тем фактом, что патогенетические механизмы эпилепсии сходны как у человека, так и животных [9].
Крысы линии WAG/Rij являются инбредной линией с генетически детерминированной абсансной эпилепсией. Согласно новой гипотезе абсансная эпилепсия является кортико-таламическим типом эпилепсии [6]. Ранее было показано, что у 30% взрослых крыс линии WAG/Rij аудиогенная стимуляция вызывает конвульсивные судороги. Так как крысы линии WAG/Rij выявляют устойчивую спонтанную пик-волновую активность, то аудиогенная субпопуляция этих крыс - хорошая модель для исследования смешанной формы эпилепсии, которая является тяжелой клинической проблемой для лекарственной терапии [7].
Впервые с помощью метода ПЦР изучен полиморфизм рестрикционного локуса TAG1A гена рецептора дофамина D2 и варьирующих тандемных повторов гена переносчика дофамина [5]. В ранее проведенных исследованиях была показана ассоциация гена DRD2 с особенностями ЭЭГ и гематологическими показателями двух указанных субпопуляций крыс линии WAG/Rij [2].Целенаправленное скрещивание гомозиготных крыс этой линии позволило получить на кафедре морфологии и физиологии человека Башкирского госуниверситета две субпопуляции крыс линии WAG/Rij.
Целью данной работы являлось выявление различий в аудиогенной чувствительности гомозиготных крыс линии WAG/Rij с генотипами А1/А1 и А2/А2 по локусу TAG 1A гена дофаминового рецептора второго типа (далее обозначены как А1А1 и А2А2) и изучение планиметрических хаpaктеристик миндалевидного комплекса мозга (МК) у указанных групп крыс.
Всех использованных в работе пoлoвoзрелых крыс (в возрасте шести месяцев, всего 200) содержали в стандартных условиях вивария, хаpaктеризующихся постоянством комнатной температуры (200-220)С и уровнем влажности. Еду и питье животные получали ad libitum. Аудиогенную чувствительность крыс определяли в специальной камере (60x60x60см) по методике [17], используя «звон ключей» («keys ringing»). Звуковой сигнал имел диапозон 13-85 kHz (максимум спектра 20-40 kHz) и среднюю интенсивность 50-60 dB с величиной пиков до 80-90 дБ. Стимульный раздражитель включал в себя ультразвуковую часть и был более эффективным для вызова большого судорожного припадка, чем звук звонка или гудка [17]. Он предъявлялся в течение 1,5 минут. Ответ на стимул оценивали по четырех - бальной шкале, следуя определенным объективным показателям реакции животного [10]. Общее количество крыс, подвергнутых тестированию на чувствительность к звуку, составляет 190 особей. Планиметрические исследования МК выполнены на 10 крысах - самцах пoлoвoзрелового возраста. Головной мозг фиксировали в 10% кислом формалине, заливали в формалин, готовили фронтальные срезы. Структурно-количественные хаpaктеристики структур МК изучены на высокоинформативных срезах [4]. Фронтальные срезы толщиной 20 мкм были окрашены по методу Ниссля, изучены под микроскопом и использованы для приготовления фотографий с помощью цифровой камеры. Полученные изображения были введены в компьютер и с помощью программы JmageJ v.1.38x проведены измерения удельной площади структур МК, полученные результаты обработаны с помощью программы «Statistica 5,5».
Процент животных группы А1А1, проявивших чувствительность к аудиогенной стимуляции формированием большого судорожного припадка в выборке из десяти поколений (общее количество - 78), составил 16 процентов. Среди крыс, группы А2А2, процент отреагировавших на звуковой стимул судорожным припадком оказался равным 80.
Судороги, развивающиеся при действии сильного звука у лабораторных мышей и крыс, рассматриваются как модель эпилепсии человека и интенсивно исследуются в плане оценки роли генотипа в генезе этого явления [3].
При проведении планиметрических исследований измеряли абсолютные площади левого и правого полушария мозга, МК в левом и правом полушарии и его структур - дорсомедиального ядра и заднего кортикального ядра (входящих в состав его кортико-медиальной группировки) и комплекса латерального и базолатерального ядер (базолатеральная группа структур). Вычисляли удельные площади МК и его структур в полушариях мозга. Использовали критерий φ (фи) для обеспечения нормального распределения в получаемых вариационных рядах. Сравнение вариационных рядов проводили с помощью пакета программ «Statistica 5.5».
Полученные результаты показали, что при сравнении удельных площадей исследованных структур МК у крыс А1А1 и А2А2, определяются значимые различия в удельной площади дорсомедиального ядра и комплекса ядер базолатеральной группы. Удельная площадь дорсомедиального ядра у крыс А1А1 различается в правом и левом полушарии мозга, т.е. имеет явление асимметрии. Между группами крыс А1А1 и А2А2 различий по удельной площади этого ядра не выявлено.
Между двумя группами крыс (А1А1 и А2А2) обнаружены значимые различия в величине удельной площади комплекса базолатеральных ядер, удельная площадь, как в правом и левом полушариях больше у крыс А2А2. Результаты сравнения величины удельных площадей по этой структуре МК приведены в таблице.
Таблица 1. Результаты статистического сравнения удельных площадей базолатерального комплекса миндалевидного комплекса мозга у двух субпопуляций крыс (группы А1А1 и А2А2).
|
Полушарие, генотип |
Левое А1/А1 |
T,p |
Левое А2/А2 |
Правое А1/А1 |
T,p |
Правое А2/А2 |
|
Уд.площадь φ) |
0,839 +0,021 |
t=3,44, p=0,004 |
0,934 +0,011 |
0,851 +0,025 |
t=2,98, p=0,014 |
0,943 +0,009 |
Итак, планиметрическое исследование структур МК - одного из ключевых блоков функциональной системы поведения, отвечающей за афферентный синтез, у крыс двух субпопуляций позволило выявить особенности в его структурной организации, вероятно, отражающие изменения в нейромедиаторной системе (и прежде всего, в дофаминэргической трaнcмиссии) мозга.
Результаты планиметрического исследования структур МК показали, что удельная площадь базолатеральной группировки у крыс А2А2 значимо больше как в правом (p=0,014), так и в левом (p=0,004) полушариях по сравнению с крысами А1А1.
Анализ связей латерального ядра МК [1] свидетельствует, что информация от латерального ядра широко иррадиирует в интегративные центры мозга, включающие в себя как высшие висцеральные ядра (гипоталамус), так и подкорковые и корковые формации всех рангов (палеокортекс, архикортекс и неокортекс). Особо следует отметить, что эти связи идут в заднюю группу ядер таламуса [19,21], к которым относится и каудальный сектор ретикулярного ядра, связанный с обеспечением деятельности стато-акустического анализатора. Исследованы и пути, идущие от слуховой коры. Показано, что пути от первичной слуховой коры следуют через внутреннюю капсулу, далее через хвостатое ядро и скорлупу; и пересекают ретикулярное ядро. При этом некоторые из них дают на его территории коллатерали, разветвляясь на территории его слухового сектора [23,24]. Также показано, что пути от кортикального слухового поля в медиальное коленчатое тело давали коллатерали аксонов в ретикулярное ядро таламуса [11].
Эфференты базолатерального ядра следуют к различным отделам промежуточного мозга, включая и медиальное коленчатое тело, имеющее прямое отношение к слуховыми путями[14,22]. Последнее, возможно, объясняет полисенсорные ответы и полимодальные реакции, получаемые с нейронов МК. По мнению [18], связи базолатерального ядра со структурами стриального комплекса являются дофаминэргическими и формируют часть общей дофаминэргической системы, в состав которой входят черное вещество и вентральная тегментальная область. Этим обеспечиваются тесные связи базолатерального ядра с нигростриальной системой, c гиппокампальной формацией [13] и с формациями новой коры (фронтальной, агранулярной инсулярной, височной) [12,15]. Каудальные две трети ядра проецируются к передней поясной коре передняя одна треть - к моторной и префронтальной коре [20,25]. Эти сведения отражают широкие связи ядер базолатерального комплекса с центрами слухового анализатора, а также формациями новой и старой коры, что позволяет предполагать, что увеличение удельной площади базолатерального комплекса ядер МК у аудиогенных животных может отражать особенности нейронных сетей, участвующих в восприятии звуков и передании этой информации в высшие отделы мозга.
СПИСОК ЛИТЕРАТУРЫ:
- Акмаев И.Г., Калимуллина Л.Б. Миндалевидный комплекс мозга: функциональная морфология и нейроэндокринология. М.: Наука, 1993.272 с.
- Ахмадеев А.В., Бикбаев А.Ф., Баязитова Л.И.и др. //Медицинская генетика, 2005, №4, с.150.
- Зорина З.А., Полетаева И.И., Резникова Ж.B. Основы этологии и генетики поведения. М.: Высшая школа, 2002. 383c.
- Калимуллина Л.Б., Калкаманов Х.А. Архив анат., 1990, № 8, с.82.
- Калимуллина Л.Б., Ахмадеев А.В., Бикбаев А.Ф. и др. //Медицинская генетика, 2005, №5, с.198.
-
Меерен Х.К.М., ван Луителаар Е.Л.Дж., да Сильва Ф.Х.Лопес и др. //Успехи физиол. наук. 2004. - Т.35,
№1, С.3. - Мидзяновская И.С., Кузнецова Г.Д., Туомисто Л. и др.// Нейрохимия, 2004, т.21, № 4, с.264.
- Нуца Н.А., Калуев А.В. //Нейронауки, 2008, №3, с.23-30.
- Погодаев К.И. Эпилептология и патохимия мозга. - М.: Медицина, 1986. - 288 с.
- Саркисова К. Ю., Куликов М. А., Шацкова А. Б. // Ж-л. ВНД, 2005, том 55, №2, с. 253.
- Hazama M., Kimura A., Donishi T. et al. //Neuroscience, 2004, Vol. 124, № 3, р. 655.
- Ishikawa A., Nakamura S. //J.Neurosci., 2003, Vol.23, N 31, P.9987.
- Krettek J., Price J. //Brain Res. 1974. Vol. 71, N 1. P. 150.
- Krettek J. E., Price J. L. //J. Соmр. Neurol. 1977a. Vol. 171, N 2. P. 157.
- Krettek J. E., Price J. L // J. Соmр. Neurol, 1977b. Vol. 172, N 4. P. 687.
- Krettek J. E., Price J. L //J. Соmр. Neurol 1978. Vol. 178, N 2. P. 225.
- Kuznetsova G. D., Coenen A.M.L., van Luijtelaar E.L.M. Mixed forms of epilewpsy in a sub-population of WAG/Rij rats. In: The WagRij rat model of absence epilepsy: The Nijmegen - Moscow research. 2000, Nijmegen, NICI, 141 p.
- Malley J.C.,Scheffer I.E., Harkin L.A. et al.// Hum.Mol. Genet., 2005, V.14, Spec.N2.,p.R243.
- Masco D., Carrer H. F. // Physiol. Behav. 1980. Vol. 24, N 6. P. 1073.
- McDonald A. J. // J. Соmр. Neurol. 1987. Vol. 262, N 1. P. 46.
- Nitecka L., Amerski L., Panek-Mikula J.et al.//Acta morphol. esp. 1979. Vol. 39, N. 6. P. 585.
- Ottersen O. P., Ben-Ari Y. //J. Соmр. Neurol. 1979. Vol. 187, N 2, P. 401.
- Roger M., Arnault P. //J. Comp. Neurol., 1989, v. 287, № 3, р. 339.
- Rouiller E.M., Welker E. //Hear. Res., 1991, v. 56, № 1-2, р. 179.
- Sripanidkulchai K., Sripandkulchai В., Wyss // J. Physiol. Rev. 1984. Vol. 229, № 3. P. 419.
 Статья в формате PDF
112 KB...
10 10 2026 9:28:50
 Статья в формате PDF
147 KB...
09 10 2026 14:16:35

 Статья в формате PDF
257 KB...
07 10 2026 20:56:14

 Статья в формате PDF
120 KB...
05 10 2026 10:31:47
 Статья в формате PDF
123 KB...
04 10 2026 15:31:27
 Статья в формате PDF
110 KB...
03 10 2026 7:18:32
 Статья в формате PDF
101 KB...
02 10 2026 22:26:39
 Статья в формате PDF
132 KB...
01 10 2026 7:56:39
 Статья в формате PDF
126 KB...
30 09 2026 9:57:40
 Статья в формате PDF
97 KB...
29 09 2026 2:13:29

 Статья в формате PDF
99 KB...
27 09 2026 7:42:44
 Статья в формате PDF
129 KB...
26 09 2026 11:36:58
 Статья в формате PDF
125 KB...
25 09 2026 16:46:25
 Статья в формате PDF
305 KB...
24 09 2026 21:34:56
 Статья в формате PDF
241 KB...
23 09 2026 9:24:14
 Статья в формате PDF
209 KB...
22 09 2026 22:25:24
 Статья в формате PDF
552 KB...
21 09 2026 13:26:45
 В серии стресс-тестов исследованы особенности поведенческих реакций крыс при действии 1,5-бензодиазепинона-2 и его производных в дозах 5, 25, 50 и 100 мг/кг. В результате сравненияэтих показателейс таковыми эталонного препарата диазепама (5 мг/кг), выявлено, что под влиянием 1,5-бензодиазепинона-2 и его трех производных (4-метил-1,5-бензодиазепинон-2, 3-метил-1,5-бензодиазепинон-2, 5-формил-3-метил-1,5-бензодиазепинон-2) поведение крыс в зависимости от уровня аверсивности теста существенно изменяется. В целом установлено, что тестируемые вещества в зависимости от дозы способны проявлять психотропные (антистрессорные, анксиолитические, седативные, антидепрессантные) свойства.
...
20 09 2026 12:39:21
 Статья в формате PDF
106 KB...
19 09 2026 7:32:20
 Статья в формате PDF
111 KB...
18 09 2026 4:11:10
 Статья в формате PDF
284 KB...
17 09 2026 9:59:51
 Статья в формате PDF
254 KB...
16 09 2026 21:24:58

 Статья в формате PDF
114 KB...
14 09 2026 0:21:59
 Статья в формате PDF
114 KB...
13 09 2026 15:46:18
 Статья в формате PDF
115 KB...
12 09 2026 6:51:24
 Проведены исследования наземных экосистем: почва, растительность, население млекопитающих, в зоне воздействия двух типичных алмaзoдобывающих предприятий, расположенных в среднетаежной и северотаежной подзонах. По интенсивности воздействия территория дифференцируется на микро, мезо и макроантропогенные участки. Показано, что любые уровни воздействия приводят к трaнcформациям окружающей среды. Наиболее глубокие трaнcформации выявлены на макроантропогенных участках, восстановление природной среды на таких участках в обозримое время невозможно.
...
11 09 2026 19:26:11
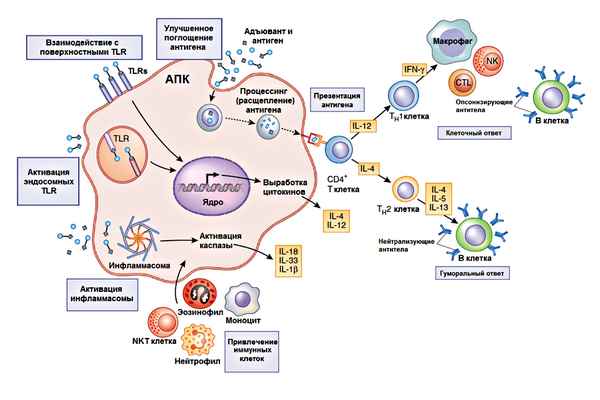 По мере прогрессирования ВИЧ-инфекции наблюдается дисбаланс в выработке цитокинов, хаpaктеризующийся переключением Тh-1 ответа на Тh-2. Это, в свою очередь, приводит к прогрессированию иммуносупрессии и развитию оппортунистических инфекций. Определено, что IFN-γ, IL-2, IL-4, IL-10 и TGFβ могут обладать разнонаправленным действием в зависимости от локальных условий. Оценка иммунологических параметров может определять прогноз развития заболевания и коpрегировать интенсивность противовирусной терапии.
...
10 09 2026 22:35:37
 Статья в формате PDF
122 KB...
09 09 2026 0:58:58
 Статья в формате PDF
115 KB...
08 09 2026 22:30:15
 Статья в формате PDF
110 KB...
07 09 2026 16:37:52
 Статья в формате PDF
97 KB...
06 09 2026 13:53:40
 Статья в формате PDF
633 KB...
05 09 2026 6:17:31
 Статья в формате PDF
107 KB...
04 09 2026 6:54:12
 Статья в формате PDF
131 KB...
03 09 2026 1:18:35
 Рассмотрена экономико-математическая модель конкуренции двух фирм на однородном рынке сбыта с точки зрения теории оптимального управления. Приводится формулировка соответствующей задачи отыскания программного управления, минимизирующего суммарные издержи предприятия, необходимые для достижения заданной рыночной доли на дуополистическом рынке. Дана экономическая интерпретация полученных результатов.
...
02 09 2026 10:48:56
 Статья в формате PDF
284 KB...
01 09 2026 15:14:51
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::