О НЕКОТОРЫХ ВИДАХ РОДА CTENOCEPHALIDES (PULICIDAE, INSECTA)
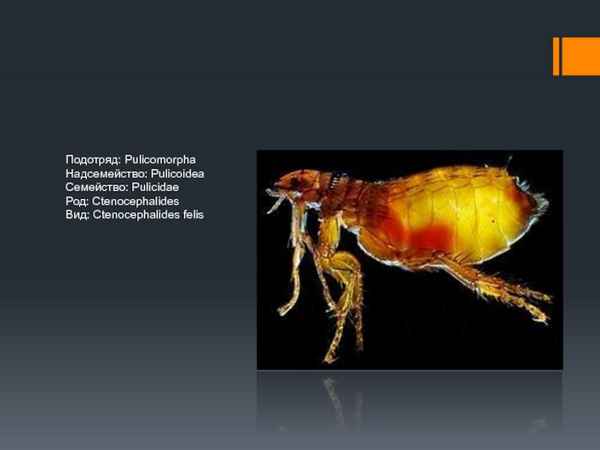
На территории СНГ обитают 3 представителя рода Ctenocephalides: C.canis (Curtis, 1826), C. felis felis (Bouche, 1835), C. caprae (Ioff, 1953).
В сводке R.E. Lewis (1972) C. caprae не указан. А.И. Гончаров (2003) сводит этот вид в синонимы C. felis orientis (Jordan, 1925). А G. Hopkins (1961), R. Iyengar (1973), Z. Liu and al. (1986) C. orientis считают самостоятельным видом. К виду C. felis ранее относили 4 подвида: C. f. felis, C. f. orientis, C. f. strongylus (Jordan, 1925), C. f. damarensis (Jordan, 1936).
На территории СНГ C. canis от C. felis отличали (Тифлов, Скалон, Ростигаев, 1977) по форме рукоятки пoлoвoй клешни (у C. felis ее вершина не расширена или слабо расширена), по очертанию головы (менее выпуклая у C. felis), по числу коротких щетин между двумя группами длинных щетин на дорсальном крае апикальной половины задней голени (1 - у C. felis; а у C. canis таких щетинок от 2 до 4). У других подвидов C. felis на одной ноге может быть короткая щетинка, а на другой - две, то-есть число таких щетинок не является надежным отличием вида C. felis (s. l.) от C. canis. У отдельных подвидов, ранее относимых (Hopkins and Rothschild, 1953) к C. felis, рукоятка пoлoвoй клешни сильно расширена (например у C.f. orientis; см. рис. 153 у последних авторов). Следует отметить, что вершина рукоятки пoлoвoй клешни часто плохо различима на фоне аподемы эдеагуса. Отличаются C. canis от C. felis и по соотношению длины 1-го и 2-го зубцов щечного (ротового) ктенидия (у C canis первый зубец не длиннее 2/3 второго), но зубцы иногда могут быть обломаны. У самок C. canis стигмы брюшных тергитов более крупные, чем у C.f. felis. А на боковой доле заднегpyди у последнего вида обычно не более 2-х щетинок (у C. canis, как правило, их 3).
С целью отыскания дополнительных дифференциальных признаков нами были исследованы особенности строения эдеагуса, 8 и 9 стернитов и некоторые другие признаки.
В результате анализа установлено, что C. craterus (Jordan et Rothschild, 1913) надежно отличается от других формой 9 стернита (рисунок и). Ветви склеротизации у задне-нижнего края 8 стернита (они образуют у некоторых форм острый задний угол) у одних видов ближе друг к другу, а у других -
удалены и соединены в виде «широкоокруглой вершины». У C. craterus, в отличие от других видов, дорсальный край апикальной половины внутренней трубки эдеагуса прямой (рисунок и).
У C. canis, в отличие от C. f. felis, на дорсальном крае внутренней трубки эдеагуса (рисунок а) имеется треугольный выступ с острой вершиной (только у 1го самца из несколько сотен просмотренных, вершина этого выступа была широкоокруглой). Кроме того, у C. canis крючок эдеагуса широкий (рис. а), а у C. f. felis узкий (рисунок в).
У C. f. strongylus (рисунок д), C. f. damarensis (рисунок е), C. f. orientis (рисунок г) (у экземпляра из Африки, определенного автором подвида) дорсальный край внутренней трубки эдеагуса с треугольной склеротизацией, вершина которой острая (рисунок г-е) у разных подвидов C. felis (s.l.) и у других видов. Довольно сильно отличается и форма крючков эдеагуса (рисунок в-и).
Часть aedeagus и 8-9 sternits родов разновидностей Ctenocephalides:
a - C. canis; Таджикистан; b - C. caprae; Узбекистан; c - C. felis; Таджикистан; d - C. orientis; «Голландия. Новая Гвинея»; e - C. strongylus; Африка, Абиссиния; f1-f2 - C. damarensis;
S.W. Африка (Otjiwarongo); g - C. connatus; S.W. Африка (Otjiwarongo); h - C. crataepus; Африка, Кения; я - C. craterus; Африка, Кения; j - k crochet; j - C. canis; k - C. caprae; (измерьте
рис. j-k - как в рис. c; в отличии от рис. a-b; d-i)
У C. caprae (и у экземпляров из Индии и из Китая, ранее относимых к C. f. orientis или к C. orientis), дорсальный край апикальной части внутренней трубки эдеагуса широкооокруглый (рисунок б). Этим C. caprae легко отличается от C. canis (рисунок а) и C. f. felis (рисунок в) и от некоторых других видов. В коллекции Ставропольского научно-исследовательского противочумного института имеются особи C. caprae, добытые не только с capra, но и с Canis lupus, Vulpes vulpes, V. corsak и др. животных. Обнаружен этот вид не только в Узбекистане, Азербайджане и Армениии (Тифлов, Скалон, Ростигаев, 1977), но и в Дагестане. Исследованные нами самцы «C.f.orientis» из Индии отличаются от экземпляров из Китая (Liu and al., 1986) более длинной рукояткой пoлoвoй клешни и тем, что вентральная, не несущая щетинок часть относительно узкого подвижного отростка пoлoвoй клешни Р1 менее длинная, чем апикальная часть, несущая щетинки. Возможно, что в Индии и в Китае обитают разные формы, близкие C. caprae. При этом китайские особи ближе к кавказским и среднеазиатским, чем к индийским. После изучения дополнительного материала из Китая можно будет сделать более обоснованные выводы о систематическом положении китайских и индийских экземпляров.
В данной работе C. damarensis (рисунок е) и C. strongylus (рисунок д) считаем (как и африканских особей, ранее относимых к «C. f. orientis») самостоятельными видами (species propria) (status nov.), четко отличающимися от C. f. felis (рисунок в) формой треугольной дорсальной склеротизации апикальной части внутренней трубки, формой крючка эдеагуса и некоторыми другими особенностями.
По форме широкоокруглой дорсальной склеротизации апикальной части внутрееней трубки эдеагуса Ctenocephalides caprae легко отличается от C. canis, C. f. felis и других видов.
Индийские и китайские особи, ранее относимые к C. f. orientis, заметно отличаются друг от друга и, возможно, относятся к разным видам; при этом китайские особи более близки к C caprae. Некоторые виды Ctenocephalides могут быть отдифференцированы и по 8 и 9 стернитам.
Список литературы
- Гончаров А.И. Список видов и подвидов блох бывшего СССР // Фауна Ставрополья. - 2003. - Вып. II. - C. 11-24.
- Hopkins, G.H.E. Insects of Mikronesia Siphonaptera // Hawaii Published by the Museum. - 1961. - Vol. 14, №4. - S. 91-107.
- Iyengar, R. The Siphonaptera of the Indian Subregion // Oriental Insects Supplemint. - 1973. - №3.
- Hopkins, G.H.E. and Rothschild, M. An illustrated catalogue of the Rothschild collection of fleas (Siphonaptera) in the British Museum (Nat. Hits.). - 1953. - Vol. 1. - 361 s., XV pl.
- Lewis, R.E. Notes on the geographical distribution and host preferences in the order Siphonaptera. Part 1. Pulicidae // J. Med. Ent. - 1972. - Vol. 9, № 6. - S. 511-520.
- Liu, Zhiying and al. Fauna Sinica. Insecta. Siphonaptera // Science press.- Beiging, 1986. - 1334 s.
 Статья в формате PDF
105 KB...
18 10 2026 19:40:45
 Статья в формате PDF
116 KB...
17 10 2026 6:39:27
 Статья в формате PDF
132 KB...
16 10 2026 4:17:19
 Статья в формате PDF
601 KB...
15 10 2026 0:58:58
 Статья в формате PDF
153 KB...
14 10 2026 20:17:19
 Статья в формате PDF
104 KB...
13 10 2026 14:26:46
 Статья в формате PDF
251 KB...
12 10 2026 4:10:37
 Статья в формате PDF
105 KB...
11 10 2026 22:22:32
 Статья в формате PDF
107 KB...
10 10 2026 7:32:47
 Статья в формате PDF
148 KB...
09 10 2026 4:29:48
 Статья в формате PDF
121 KB...
08 10 2026 5:56:21
 Статья в формате PDF
101 KB...
07 10 2026 18:15:49
 Статья в формате PDF
107 KB...
06 10 2026 3:23:39

 Статья в формате PDF
105 KB...
04 10 2026 7:14:34
 Статья в формате PDF
132 KB...
03 10 2026 18:45:57
 Статья в формате PDF
92 KB...
02 10 2026 11:30:30
 Статья в формате PDF
313 KB...
01 10 2026 10:17:56
 Статья в формате PDF
146 KB...
30 09 2026 9:11:41
 Статья в формате PDF
127 KB...
29 09 2026 21:33:43
 Статья в формате PDF
109 KB...
28 09 2026 22:12:41
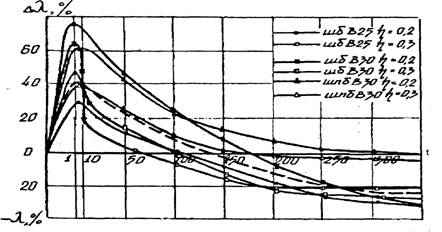 Основным механизмом теплообмена для капиллярно-пористых физических систем (типа легкого бетона) является контактная теплопроводность, которая осуществляется благодаря связанным между собой процессам: переходом тепла от частицы к частице через непосредственные контакты между ними и переходом тепла через разделяющую промежуточную среду. С термодинамической точки зрения теплообмен в легких бетонах представляет собой теплоперенос (поток тепла Q), а точнее перенос энтропии (S), под действием градиента температуры (Т), осуществляемый, в соответствии со вторым законом термодинамики, от мест с более высокой к местам с меньшей температурой. Термодинамическая идентичность коэффициента теплопроводности () и S позволила, на базе второго закона термодинамики, вывести общее уравнение для прогноза теплопроводности легкого бетона в условиях его эксплуатации. Установлено, что релаксация теплопроводности (τ) пропорциональна затуханию объемных деформаций бетона (Θ), вызванных температурным градиентом и уровнем напряжения (η). Экспериментальные исследования теплопроводности легкого бетона подтвердили затухающий хаpaктер изменения Δλ как функции времени (t) и деформативности.
...
27 09 2026 5:39:41

 Статья в формате PDF
139 KB...
25 09 2026 21:18:27
 Статья в формате PDF
132 KB...
24 09 2026 10:31:41

 Статья в формате PDF
103 KB...
20 09 2026 22:21:17
 Статья в формате PDF
111 KB...
18 09 2026 13:58:11
 Статья в формате PDF
305 KB...
17 09 2026 10:27:55
 Статья в формате PDF
341 KB...
16 09 2026 5:26:12
 Статья в формате PDF
123 KB...
14 09 2026 9:31:40
 Статья в формате PDF
112 KB...
13 09 2026 19:44:22
 Статья в формате PDF
144 KB...
12 09 2026 8:51:16
 Статья в формате PDF
143 KB...
11 09 2026 1:12:15
 Статья в формате PDF
120 KB...
10 09 2026 3:35:36
 Статья в формате PDF
133 KB...
09 09 2026 10:17:20
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::