ХРОНОТРОПНОЕ ВЛИЯНИЕ АЦЕТИЛХОЛИНА НА СИНУСНО-ПРЕДСЕРДНЫЙ УЗЕЛ СЕРДЦА КРЫСЫ IN VITRO
Эксперименты проводились на участках правого предсердия крыс-самцов линии Wistar, содержащих переднюю стенку, верхнюю и нижнюю полые вены и ушко. Синусно-предсердный узел располагался на границе верхней полой вены и ушка по ходу одноименной артерии. Препарат закрепляли и помещали в проточную термостатируемую кювету, заполненную модифицированным раствором Кребса-Рингера, уравновешенным 5% карбогеном до pH=7,4 при t =38 оС. Местоположение ДПР определяли с помощью стеклянных микроэлектродов и фиксировали по линейке окуляр-микрометра. Критерием истинности клеток-водителей ритма служила форма их потенциала действия (наличие фазы медленной диастолической деполяризации, плавный переход из фазы медленной диастолической деполяризации в фазу начального быстрого подъема потенциала и низкая скорость начального быстрого подъема потенциала). После обнаружения ДПР в кювету последовательно (через 15-минутные отмывки) вводили растворы ацетилхолина иодида в трех возрастающих концентрациях (2.5*10-6 г/мл: 5.0*10-6 г/мл: 7.5*10-6 г/мл) и во время каждого из введений вновь определяли (по линейке) местоположение доминантного пейсмекерного региона. В ходе эксперимента также регистрировали базальный уровень частоты следования потенциалов действия (ЧСПД) и его изменения при введении различных концентраций ацетилхолина.
Как и ожидалось, в ответ на введение ацетилхолина наблюдалось снижение ЧСПД клеток-водителей ритма. При этом последовательное увеличение концентраций ацетилхолина вызывало нелинейное урежение ЧСПД с выходом на некоторый конечный уровень. Ранее в аналогичных экспериментах нами был показан хаpaктер передвижения ДПР в зависимости от возрастающих концентраций норадреналина в кювете. Он имел поначалу вид линейной зависимости. Дальнейшее повышение концентрации норадреналина выявило предел передвижения ДПР, который составил около 0.3 мм. При этом передвижение во всех случаях наблюдалось вниз вдоль артерии синусно-предсердного узла. Изучение передвижения ДПР в экспериментах с ацетилхолином не выявило такового в 11 из 13 случаев. Местоположение ДПР оставалось постоянным. В двух экспериментах из 13 ДПР переместился вверх вдоль артерии синусного узла на 0,05 и 0,12 мм соответственно.
Таким образом, векторы перемещения доминантного пейсмекерного региона в ответ на введения ацетилхолина и норадреналина разнонаправлены, а действие ацетилхолина состоит в возвращении доминантного пейсмекерного региона в исходное положение, т. е. в область функционального ядра.
 Статья в формате PDF
173 KB...
27 09 2026 1:58:41
 Статья в формате PDF
124 KB...
26 09 2026 13:16:15
 Статья в формате PDF
114 KB...
25 09 2026 2:43:50
 Статья в формате PDF
112 KB...
24 09 2026 6:16:18
 Статья в формате PDF
128 KB...
23 09 2026 1:58:53
 Статья в формате PDF
131 KB...
22 09 2026 11:58:33
 Статья в формате PDF
112 KB...
21 09 2026 2:12:15
 В статье представлен результат первого в Забайкалье опыта использования в травматологической пpaктике систем трaнcпедикулярной фиксации позвоночника. Проанализировано 12 случаев успешного применения метода.
...
19 09 2026 18:36:52
 Статья в формате PDF
132 KB...
18 09 2026 3:21:15
 Статья в формате PDF
104 KB...
17 09 2026 13:34:30
 Статья в формате PDF
85 KB...
16 09 2026 6:50:37
 Статья в формате PDF
173 KB...
15 09 2026 2:46:37
 Статья в формате PDF
99 KB...
14 09 2026 11:33:32
 Статья в формате PDF
273 KB...
13 09 2026 1:11:27
 Статья в формате PDF
306 KB...
12 09 2026 3:27:52
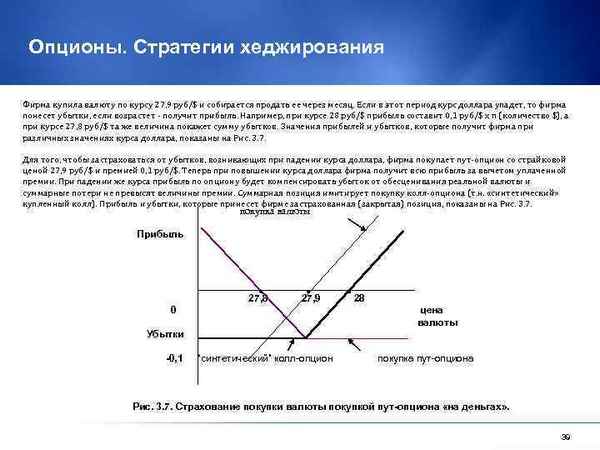 В данной работе предложен принципиально новый подход нахождения справедливой цены опциона европейского типа при условии дискретности хеджирования на эффективном рынке базового актива. Развитый подход позволяет определить стоимость опциона для достаточно широкого класса распределений цены базового актива, не ограничиваясь гипотезой о том, что распределение цен базового актива подчиняется логнормальному закону. Анализ полученных результатов позволил утверждать, что существуют такие состояния рынка, при которых осуществить хеджирование не предоставляется возможным. Данный эффект не находится в противоречии с теорией Блэка-Шоулза, т.к. конфигурация областей «нехеджируемости» вырождается в пустое множество при достаточно большом количестве актов хеджирования и достаточно малом промежутке времени между актами хеджирования
...
11 09 2026 6:17:58
 Статья в формате PDF
107 KB...
10 09 2026 2:43:52
 Статья в формате PDF
114 KB...
09 09 2026 18:38:40
 Статья в формате PDF
130 KB...
08 09 2026 23:35:47
 Статья в формате PDF
258 KB...
07 09 2026 8:21:25
Статья в формате PDF 392 KB...
06 09 2026 8:30:49
 Статья в формате PDF
115 KB...
05 09 2026 3:43:42
 Статья в формате PDF
118 KB...
04 09 2026 14:43:46
 Статья в формате PDF
110 KB...
03 09 2026 16:45:12
 Статья в формате PDF
141 KB...
01 09 2026 7:55:12
 Статья в формате PDF
180 KB...
31 08 2026 1:49:36
 Статья в формате PDF
130 KB...
30 08 2026 12:58:15
 Статья в формате PDF
127 KB...
29 08 2026 3:13:43
 Статья в формате PDF
97 KB...
28 08 2026 19:19:24
 Статья в формате PDF
312 KB...
27 08 2026 18:20:41
 Статья в формате PDF
342 KB...
26 08 2026 22:53:13

 Статья в формате PDF
121 KB...
24 08 2026 21:18:13
 Статья в формате PDF
114 KB...
23 08 2026 22:47:14
 Статья в формате PDF
142 KB...
22 08 2026 11:44:41
 Статья в формате PDF
127 KB...
20 08 2026 7:36:59
 Статья в формате PDF
140 KB...
19 08 2026 18:17:50
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::