ПОЛОВЫЕ РАЗЛИЧИЯ В ДЕНДРОАРХИТЕКТОНИКЕ НЕЙРОНОВ ЗАДНЕГО КОРТИКАЛЬНОГО ЯДРА МИНДАЛЕВИДНОГО КОМПЛЕКСА МОЗГА

Целью работы являлось выявление пoлoвых различий в дендроархитектонике нейронов Сор.
Материал и методы. Исследования проведены на 30 пoлoвoзрелых крысах линии Вистар, содержавшихся в идентичных условиях вивария при свободном доступе к еде и воде. Все животные (15 самок, 15 самцов) были умерщвлены в возрасте 9 месяцев с соблюдением всех правил работы с лабораторными животными. Фронтальные срезы толщиной 100 мкм были обработаны по методу Гольджи и заключены в канадский бальзам. Идентификация нейронов проведена на основании классификации [4]. На рисунках нейронов Сор, выполненных при увеличении 200 раз, подсчитывали число первичных дендритов, число свободных концов всех дендритов нейрона, число всех точек ветвления дендритов нейрона, измеряли общую длину дендритов нейрона, площадь дендритного поля, длину самого длинного дендрита и подсчитывали на нем число свободных концов и число точек ветвления. Также
измеряли длину самого разветвленного дендрита и подсчитывали его число свободных концов и число точек ветвления. У всех нейронов определяли суммарную величину длины всех концевых веточек дендритов. Использовали и ряд произвольных параметров: соотношение числа свободных концов дендритов нейрона к числу первичных дендритов, соотношение числа свободных концов дендритов нейрона к числу точек ветвления дендритов нейрона и соотношение числа свободных концов дендритов нейрона к величине площади дендритного поля. Величины выражали в условных единицах, полученных при работе с курвиметром и планиметром. Статистическую обработку выполняли с использованием пакета программ «Statistica 5.1».
Результаты исследования. Регистрация описательных и количественных хаpaктеристик дендритов проведена раздельно для длинноаксонных редковетвистых и длинноаксонных густоветвистых нейронов.
Анализ представительства длинноаксонных редковетвистых нейронов в составе Сор у самцов и самок крыс показал, что выявились все основные типы клеток: нейробластоформные, короткодендритные и ретикулярные. Однако их соотношение имеет пoлoвые различия: так у самцов оно выражается отношением 17:50:33 (где число соответствующих клеток, указанных выше в определенном порядке, выражен в процентах), а у самок как 18:41:41. Таким образом, почти при равном представительстве нейробластоформных нейронов у крыс разного пола, у самцов больше короткодендритных нейронов по сравнению с ретикулярными.
Результаты анализа количественных хаpaктеристик дендритов длинноаксонных редковетвистых нейронов Сор показали, что. сравнение этих данных по самцам и самкам крыс с использованием критерия Стьюдента выявляет высокозначимые различия по числу первичных дендритов - их больше у самцов (p<0,001).
Подавляющее большинство длинноаксонных густоветвистых нейронов, выявлявшихся в Сор у всех групп животных были подкорковыми кустовидными, для которых хаpaктерно ветвление дендритов на небольшом расстоянии от тела клетки. Визуальный анализ рисунков нейронов Сор не обнаружил каких-либо особенностей их дендритов у самцов и самок крыс, однако, критерий Стьюдента показал, что нейроны этого ядра у самок крыс имеют большую общую длину (p<0,01).Использованные в работе производные параметры оказались малоинформативными.
Обсуждение полученных данных. Заднее кортикальное ядро (Сор), входящее в состав заднего отдела МТ, по своим конструктивным особенностям является межуточной формацией и в его составе различают поверхностную бесклеточную зону и глубокую клеточную зону с дифференциацией на медиальную и латеральную части [2]. Предполагается, что Сор участвует в обеспечении связей заднего отдела МТ с его передним отделом, определяя взаимодействие нейроэндокринных центров МТ[1]. Все вышеизложенное объясняет обоснованность проведенного исследования.
Исследования, посвященные изучению пoлoвых различий в нейронной организации структур головного мозга, единичны. Известно, что они имеют место у крыс в преоптической области [6], нейронах зубчатой фасции гиппокампа [7], а также в ceкc-диморфном ядре у канареек [11], вентромедиальном и аркуатном ядрах гипоталамической области [8].Показано, что пoлoвые различия в нейронной организации в преоптической области у крыс проявляются между вторым и третьим днем раннего постнатального онтогенеза [6], т.е. в периоде ПДМ.Подобных сведений по МТ нет.
Отчетливое влияние андрогенов на рост дендритов исследовано в культуре ткани [10]. Показано, что пoлoвые стероиды способны вызывать экспрессию генов, влияя на энхансеры [5,9].
Известно, что дендриты являются наиболее лабильной и изменчивой частью нейрона, обеспечивающей максимальные возможности для осуществления межнейрональных взаимодействий [3]. В процессе исторического развития организмов, если иметь ввиду особенности дендритного древа нейронов, формируется два основных типа клеток - длинноаксонные редковетвистые и длинноаксонные густоветвистые нейроны [4]. Изучение их локализации в различных отделах центральной нервной системы у разных представителей позвоночных позволило Т.А.Леонтович (1978) сформулировать учение о
редковетвистой (РНС) и густоветвистой нейронной системах (ГНС) и показать, что увеличение доли ГНС, имеющее место в прогрессивной эволюции млекопитающих, не приводит к исчезновению редковетвистых длинноаксонных нейронов, и они сохраняются в виде рассеянных элементов даже в формациях новой коры. Автор объясняет этот феномен функциональными особенностями длинноаксонных густоветвистых и длинноаксонных редковетвистых нейронов, а именно участием первых в аналитикосинтетической работе нервных центров и включением вторых в обеспечение эфферентных влияний на другие центры. Исходя из этого, анализ их представительства и хаpaктеризующих их количественных хаpaктеристик должен проводиться отдельно.
Все три класса длинноаксонных редковетвистых нейронов - нейробластоформные, короткодендритные и ретикулярные - имеют четкие дифференцировочные критерии и легко распознаются в препаратах. Они были выявлены на территории Сор как у самок, так и у самцов крыс Однако,. соотношение короткодендритных и ретикулярных нейронов было изменено у самцов и самок крыс, и это требует осторожной интерпретации, т.к. метод Гольджи выявляет лишь небольшую часть клеток. Однако, стандартные условия, имевшие место при обработке материала обеих групп животных, позволяют отметить этот факт.
Результаты сравнительного анализа количественных хаpaктеристик длинноаксонных редковетвистых нейронов у самок и самцов крыс показали, что нейроны этого типа у самцов имеют большее число первичных дендритов.
Длинноаксонные густоветвистые нейроны Сор носят хаpaктер подкорковых кустовидных нейронов и визуально в них невозможно отметить каких-либо особенностей, связанных с фактором пола. Статобработка результатов анализа количественных хаpaктеристик дендритов, однако, выявляет, что общая длина дендритов нейронов значимо больше у самок крыс (р <0,01).Отмеченное удлинение дендритов нейронов Сор в целом не столь велико и не сопровождается увеличением площади дендритного поля..
Обобщая полученнные результаты, нельзя не акцентировать внимания на различиях, отчетливо проявившихся в реакции дендритов двух типов длинноаксонных нейронов. У густоветвистых нейронов хаpaктеристики дендритов меняются в своем количественном выражении, у редковетвистых носят качественный хаpaктер, т.к. увеличивается число первичных дендритов, сопровождаемое изменением поверхности клетки. Можно высказать предположение, что экспрессия генов, несомненно имеющая место в основе этих процессов - удлинении дендритов или образовании новых дендритов под влиянием андрогена - осуществлялась с участием разных генов, приводя к различным эффектам, следовательно, два типа длинноаксонных нейронов - редковетвистые и густоветвистые - могут иметь различные генетические программы, определяющие формирование дендритов. Если встать на эту позицию, то легко объяснить и имеющиеся у них особенности функций, а также то, что на протяжении эволюции нервной системы, когда необходимость в повышении интегративных способностей нейронов в связи с усложнением организмов возрастает, имеет место сохранение редковетвистых нейронов. Имеют ли высказанные предположения под собой почву, должны показать дальнейшие исследования.
Работа поддержана грантом Минобразования РФ PD 02-1.4-93.
Литература
- Акмаев И.Г., Калимуллина Л.Б. Миндалевидный комплекс мозга: функциональная морфология и нейроэндокринология. М., Наука,1993.272 С.
- Ахмадеев А.В., Калимуллина Л.Б.. Морфология, 2000, т.117,вып.5, с.19.
- Косицын Н.С. Микроструктура дендритов и аксодендритных связей в центральной нервной системе. М., Наука, 1976.198 С.
- Леонтович Т.А. Нейронная организация подкорковых образований переднего мозга. М.,Медицина, 1978. 384 С.
- Fannon S.A., Vidaver R.M., Marts S.A. action. J.Appl.Physiol., 2001, v.91, N.4, p.1854.
- Hammer R.P., Jacobson C.D. Intern. J. Develop. Neurosci., 1984, v.2, N.1, p. 77.
- Juraska J.M., Fitsh J., Henderson C., Rivers N. Вrain Res., 1985, v.333, N.1, p. 73.
- Mong J.A., Glaser E., McCarthy M.M. J.Neurosci., 1999, v.19, N.4, p. 1464
- Scarlett C.O., Robins D.M. Mol. Endocrinol.,1995, v.9, N.4, p. 413
- Toran-Allerand C.D. Amer. Zool., 1978, v.18, p.553.
- Voogd T. De, Nottebohm F. Science, 1981, v. 214, N. 4517, p.202.
 Статья в формате PDF
119 KB...
31 10 2026 4:22:51
 Проведено исследование 63 препаратов уретровезикального сегмента и предстательной железы мужчин первого зрелого периода, относящихся к различным расам: европеоидам и монголоидам. Результаты: 1. межмочеточниковая складка Мерсье, расстояние от внутреннего отверстия уретры до устья мочеточника, площадь треугольника Льето достоверно больше у монголоидов при отсутствии достоверной разницы показателей «уретрального» угла треугольника Льето. 2. уретровезикальный угол, длина супрамонтанной части простатического отдела уретры и длина всего простатического отдела уретры у монголоидов достоверно больше. 3. семенной бугорок у представителей монголоидной расы в 85,7% представлял собой утолщение центральной складки простатического отдела уретры, наличие простатической маточки не зарегистрировано ни в одном случае. Семенной бугорок представителей европеоидной расы был более выражен и представлял собой анатомическое образование бόльшими размерами, простатическая маточка зарегистрирована в 60% случаев. 4. общий объем простаты у европеоидов и монголоидов не отличался, однако, центральная ее доля у монголоидов достоверно больше, а переходная достоверно меньше.
...
30 10 2026 19:32:43
 В последние годы на медицинском факультете Российского университета дружбы народов периодически проводятся научные конференции международного масштаба, на которых в том или ином объёме обсуждаются проблемы, связанные с воздействиями на организм нарушений взаимоотношения человека со средой его обитания. Важность такой тематики стала несомненной с того момента, когда в мировой научной литературе впервые появился термин «Болезни цивилизации». Это определение включает в себя следующий смысл: «Болезни цивилизации – это результат безответственного и неправильного использования возможностей, предоставленных человеку цивилизацией» (Шош, Гати, Чолаи, 1972).
...
29 10 2026 16:13:21
 Статья в формате PDF
121 KB...
27 10 2026 21:24:35
 Статья в формате PDF
228 KB...
25 10 2026 23:50:32
 В работе приведены результаты применения ГИС технологий в различном масштабе для анализа структуры растительности и влияние антропогенной нагрузки на параметры растительного покрова регионов, в целом, и отдельных сообществ Якутии, в частности. Примененные подходы могут быть использованы в различном масштабе для анализа степени антропогенного пресса территорий и анализа растительности.
...
24 10 2026 17:14:24
 Статья в формате PDF
110 KB...
23 10 2026 14:59:58
 Статья в формате PDF
199 KB...
22 10 2026 14:32:55
 Статья в формате PDF
324 KB...
21 10 2026 16:30:28
 Статья в формате PDF
130 KB...
20 10 2026 0:48:35
 Статья в формате PDF
153 KB...
19 10 2026 14:55:12
 Важность разработки и внедрения системы менеджмента качества в вузе отражена и закреплена в ряде приказов Федерального агентства по образованию и обусловлена предстоящим вступлением страны в ВТО и присоединение к Болонскому процессу. В статье описываются алгоритм, этапы деятельности, результаты разработки и внедрения СМК в Кузбасском государственном техническом университете.
...
17 10 2026 11:39:56

 Статья в формате PDF
193 KB...
15 10 2026 14:36:36
 Статья в формате PDF
106 KB...
14 10 2026 3:18:26
 Проанализированы изменения теплового состояния грунтов при техногенных воздействиях. Выявлено значительное повышение среднегодовой температуры верхних горизонтов криолитозоны и увеличение глубины сезонного протаивания при вырубке леса и удалении напочвенного покрова, вырубке леса на гарях в межаласном типе местности. Количественно оценена динамика среднегодовой температуры грунтов на разнорежимных вырубках, на гарях в зависимости от стадий сукцессионного развития растительности.
...
13 10 2026 14:58:12
 Статья в формате PDF
134 KB...
12 10 2026 2:11:54
 Статья в формате PDF
96 KB...
11 10 2026 14:14:29

 Статья в формате PDF
110 KB...
09 10 2026 0:26:52
 Статья в формате PDF
227 KB...
08 10 2026 22:30:40
 Статья в формате PDF
153 KB...
07 10 2026 22:42:55

 Статья в формате PDF
108 KB...
05 10 2026 15:46:16
 Статья в формате PDF
257 KB...
04 10 2026 20:27:27
 Статья в формате PDF
105 KB...
03 10 2026 6:27:55
 Статья в формате PDF
77 KB...
02 10 2026 10:34:27

 Статья в формате PDF
133 KB...
30 09 2026 7:10:50
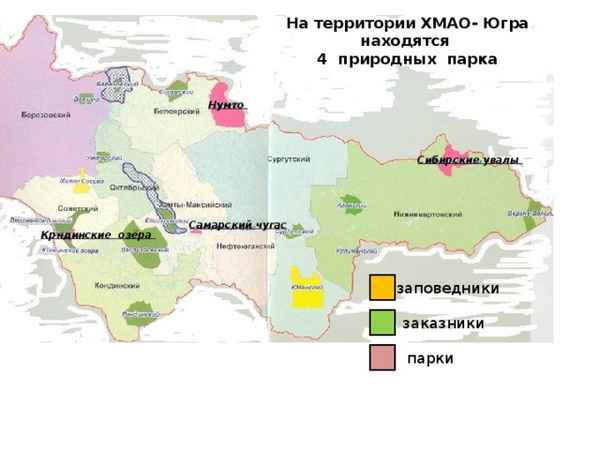 В статье дана комплексная хаpaктеристика природных условий территории природного парка «Нумто»: приводятся сведения по геоморфологии, климату, гидрографии, растительному покрову, фауне уникального участка водно-болотных угодий на стыке подзон северной и средней тайги Западной Сибири.
...
29 09 2026 5:33:58
 Статья в формате PDF
313 KB...
27 09 2026 21:15:11
 Статья в формате PDF
134 KB...
26 09 2026 6:54:41
 Статья в формате PDF
331 KB...
25 09 2026 8:42:13
 Статья в формате PDF
113 KB...
23 09 2026 19:37:32
 Исследованы показатели окислительно-антиоксидантной системы (содержание малоновогодиальдегида, каталазная и общая антиоксидантная активности) мышечной ткани русского осетра и карпа при свинцовой интоксикации. В мышцах молоди осетра обнаружена активация перекисного окисления липидов и снижение общей антиоксидантной активности. В отличие от осетра у молоди карпаактивация перекисного окисления липидов сопровождается компенсаторным повышением общей антиоксидантной активности и поддержанием достаточно высокого уровня активности каталазы. Повышение активности каталазы осетра при значительной активации ПОЛ может быть связано с выходом фермента из клеточных органелл, вследствие лабилизации клеточных мембран. Полученные данные свидетельствуют о большей толерантности карпа к свинцовой интоксикации, по сравнению с контролем.
...
22 09 2026 6:11:26
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
