МИНДАЛЕВИДНЫЙ КОМПЛЕКСЯДЕРНО-ПАЛЕОКОРТИКАЛЬНЫЙ КОМПОНЕНТ МОЗГА
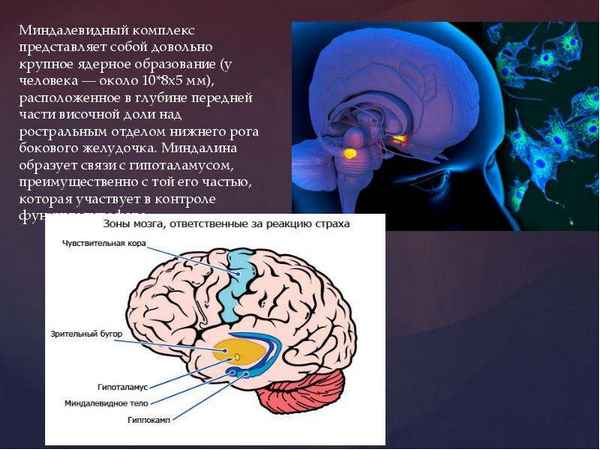
Миндалевидный комплекс (МК) вовлечён в центральные механизмы регуляции широкого круга физиологических процессов, начиная от деятельности отдельных органов до целостных поведенческих актов, определяющих адаптацию организмов, их пищевое и пoлoвoе поведение [2]. Его место в лимбической системе определяется ключевой ролью в анализе полисенсорной информации, поступающей из внешней и внутренней среды организма с последующим переключением её на висцеральные центры ствола головного мозга и его высшие отделы - зрительный бугор, неокортекс [9,13, 16]. Важна роль МК в модуляции нейроэндокринной и иммунной систем. В силу указанного, исследования МК приобретают актуальность в рамках новой интегральной дисциплины - нейро-иммунноэндокринологии [1].
Изменение объёмных хаpaктеристик МК, выявленное с помощью новейших методов исследования мозга - компьютерной томографии и ядерно-магнитного резонанса - является ранним диагностическим признаком болезни Альцгeймера, шизофрении, височной эпилепсии [14]. Успешно развивающиеся исследования нейрохимии МК показывают его участие в развитии наркомании [15,20], что придаёт исследованиям МК социальную значимость. Однако в вопросах структурно-функциональной организации МК и сегодня много загадочных феноменов.
Замечательной особенностью МК является удивительная устойчивость к гипоксии и наркотическим веществам [4]. Это чрезвычайно важно для реаниматологии, так как сохраняющаяся при клинической cмepти в МК электрическая активность, распространяясь по всему головному мозгу тонизирует все нервные образования и стимулирует пусковые механизмы эмоциональных реакций, восстанавливая жизнеспособность организма [3]. Вполне возможно, что это специфическое свойство МК является производным специфической конструкции данного образования мозга.
Также известно, что для МК хаpaктерен низкий порог судорожной активности и имеет место специфическая форма электроэнцефалограммы: на медленные волны накладываются вспышки высокоамплитудной активности [6]. Несмотря на многочисленные исследования, до сих пор нет определенного мнения в отношении ее генеза. Ранее предполагали, что она генерируется в пириформной коре и пассивно распространяется в МК. Но это мнение встречает ряд возражений, в частности, ссылка на увеличение амплитуды веретен при перемещении регистрирующего электрода от ритмоводителя (пириформной коры) в удаленные области (т. е. приближение к ядрам). В этой связи заманчиво предположить, что специфическая форма электрической активности предопределяется не пириформной корой, и не подлежащими ядерными структурами, а является следствием их тесного единства в МК: взаимодействием изначально различных функциональных свойств порождает явление нового качества. В пользу этого предположения свидетельствуют данные электрофизиологических исследований, в которых получены доказательства тесных динамических взаимовлияний ядер МК и корковых формаций [21].
Миндалевидный комплекс (МК) представляет собой одну из структур конечного мозга, которую традиционно относят к системе базальных ядер. Более внимательное рассмотрение структурной организации этой области мозга позволяет заметить в ней особенность, отличающую ее от обычной модели организации базальных ядер: помимо ядерного принципа в организации МК можно выделить также экранный, свойственный организации оптических центров и корковых формаций головного мозга [7].
Своеобразие строения МК является отражением эволюционных преобразований, происходивших в этом участке головного мозга в процессе его длительного исторического развития. Возникнув на самых ранних этапах формирования головного мозга как центр для анализа обонятельных импульсов, он становится в последующем территорией, на которой появляются первые формации древней коры.
Древняя кора (обонятельная или палеокортекс) имеет четкие критерии для идентификации [18]. К ним относятся: 1) стратификация скоплений клеток (число тангенциальных слоев должно быть не менее трех, один из них плексиформный); 2) четкая радиальная и тангенциальная исчерченность слоев, предопределяемая упорядоченным расположением отростков и тел нейронов; 3) наличие прострaнcтвенного градиента в топографии афферентных и эфферентных систем волокон.
Указанные критерии позволили нам в процессе цитоархитектонического анализа выделить среди структур МК формации древней коры. К ним мы отнесли ядро латерального обонятельного тpaкта, периамигдалярную кору и пириформную кору. Ядро латерального обонятельного тpaкта находится в переднем отделе МК, периамигдалярная кора - в составе центрального и заднего отделов, пириформная кора покрывает латеробазальную поверхность полушария и входит в состав всех отделов МК[7].
При классификации остальных структур МК мы опирались на учение А.А.Заварзина о ядерных и экранных центрах [5]. Ядерный центр - это скопление, в которое собираются нервные клетки, однозначные в функциональном отношении, формирующееся на определенном этапе исторического развития организмов на базе диффузной нервной системы. Ядерный принцип организации серого вещества нервной системы широко представлен в составе спинного мозга, всех отделов ствола мозга, базальных ганглиях, достигает высокой структурной сложности в зрительном бугре. В экранном центре имеют место правильное плоскостное расположение элементов и возможность обеспечения широких ассоциативных связей. Если в ядерном центре реализация выполняемых функций предопределяется только структурно-функциональными хаpaктеристиками составляющих его нейронов, то в экранных центрах, кроме указанного фактора ведущую роль играет прострaнcтво, векторные хаpaктеристики которого определяют не только взаимное расположение элементов, но и качество бесконечного множества ассоциаций.
Большинство структур МК носит хаpaктер типичных ядер, т.е. представляет собой компактные скопления нервных клеток. Это центральное ядро, вставочные массы, латеральное и базолатеральное ядра и др. Однако среди структур МК есть немало и переходных формаций, занимающих промежуточное положение между ядерным и экранным принципом организации серого вещества нервной системы. Такими межуточными формациями[10] являются переднее кортикальное ядро и заднее кортикальное ядро. Подробно разработанная эволюционно-морфологическая классификация структур МК нашла отражение в работе[8].
На единство ядер и палеокортикальных структур в МК указывает и их партнерство в формировании основных систем волокон этого образования мозга. Известно, что основные связи МК с другими структурами мозга идут в составе конечной полоски и вентрального амигдалофугального пути. Последний, несмотря на свое название, так же как и конечная полоска, представляет собой систему двусторонних связей МК, гипоталамуса, центров ствола мозга и ряда других структур. В многочисленных исследованиях показано, что обе эти системы формируются за счет аксонов нервных клеток, как ядер, так и формаций древней коры. В большей степени это хаpaктерно для вентрального амигдалофугального пути (филогенетически более молодой системы), который начинается от периамигдалярной и пириформной коры, пронизывает ядра базолатеральной группы и через переднюю амигдалярную область достигает латеральной гипоталамической области, где вступает в медиальный пучок конечного мозга [17].
Своеобразие строения МК, заключающееся в уникальном сочетании на его территории ядерного и экранного принципов организации серого вещества, недооценивается в нейроанатомии, в которой его составные части продолжают фигурировать в качестве базальных ядер конечного мозга. Есть исследователи, которые противопоставляют ядра МК и структуры палеокортекса и рассматривают их как раздельные образования, связанные лишь общей топографией. С другой стороны, есть и такие, которые в морфологических и электрофизиологических исследованиях показали тесные двусторонние связи периамигдалярной и пириформной коры с ядрами МК, определяющие формирование органического комплекса взаимосвязанных и взаимовлияющих частей. Можно предполагать, что взаимосвязи, существующие между ядрами и палеокортикальными формациями, предопределяют по существу формирование в миниатюре корково-подкорковых взаимоотношений, которые в последующем во всей мощи предстают в системе новая кора-таламус.
Мы предполагаем существование в МК стройной системы интеграции, в которой происходит обработка обонятельной и необонятельной информации с последующей реализацией ее в деятельности внутренних органов и в поведении. В ней мы исходим из того, что «миндалины являются самым древним отделом мозга, который... интегрирует все поведенческие реакции у низших форм животных. Поэтому становится понятным тот удивительный и до сих пор непонятный факт, что электрическим раздражением миндалин можно вызвать как целостные поведенческие самозащитные и пищевые реакции, так и в отдельности их сомато-вегетативные компоненты» [3]. Анализ функций МК как интегративного центра мозга читатель найдет в монографии С. А. Чепурнова и Н. Е. Чепурновой [12].
Итоги рассмотрения различных аспектов функциональной морфологии МК, затрагивающих такие вопросы, как: топографическое единство различных клеточных популяций, их генетическое родство, сочетание ядерного и экранного принципов организации серого вещества, функциональное содружество ядерных и палеокортикальных структур на территории МК - позволяет предложить новый взгляд на функциональную морфологию этого образования мозга. По нашему представлению МК - это ядерно-палеокортикальный центр конечного мозга (ядерно-палеокортикальный комплекс). На сегодняшний день положения этой концепции получили подтверждение в ряде работ [12, 16, 19, 22].
СПИСОК ЛИТЕРАТУРЫ:
- Акмаев И.Г., Гриневич В.В. Нейроиммуноэндокринология гипоталамуса. М., Медицина, 2003, 168 с.
- Акмаев И.Г., Калимуллина Л.Б. Миндалевидный комплекс мозга: функциональная морфология и нейроэндокринология. М.,Наука,1993, 272 с.
- Бериташвили И. С. Гагрские беседы: Структура и функция архипалеокортекса. М.:Наука, 1968, с.289.
- Гурвич А.М., Романова Н.П., Волков А.В. Гагрские беседы: Структура и функция архипалеокортекса. М.:Наука, 1968, с.274
- Заварзин А..А. Труды по теории параллелизма и эволюционной динамики тканей. Л.:Наука,1986. 194с
- Ильюченок Р.Ю., Гилинский М.А., Лоскутова Л.В. и др. Миндалевидный комплекс (связи, поведение, память). Новосибирск: Наука, 1981, 230 с.
- Калимуллина Л.Б. Морфология миндалевидного комплекса мозга. Уфа, БашГУ, 1987. 86с.
- Калимуллина Л.Б., Ахмадеев А.В., Муталова Л.Р., Минибаева З.Р. Структурная организация миндалевидного комплекса мозга крысы. //Росс.физиол.ж. им. И.М.Сеченова, 2003, т.89, №1, с.8
- Любашина О.А. Механизмы амигдалофугальной модуляции ваго-вагального рефлекса. Тез. док. межд.конф. «Механизмы функционирования висцеральных систем». СПб.-2001.с.225
- Филимонов И. Н. Избранные труды. М.: Медицина, 1974. 340 с.
- Чепурнов С.А., Чепурнова Н.Е. Миндалевидный комплекс мозга М.: Изд-во МГУ, 1981.255с.
- Чепурнов С А., Чепурнова Н.Е. Нейропептиды и миндалина М.: Изд-во МГУ, 1985. 128с
- Aslan N., Goren Z., Onat F., Oktay S. //Eur. J. Pharmacol., 1997.V.333, № 1.-p. 63
- Bremner J.D., Na***an M., Anderson E.R.et al. //Am. J. Psychiatry, 2000.-V.157, № 1.p.115.
- Franklin T.R., Druhan J.P. //Eur J. Neurosci. 2000. -V. 12, № 6. -p. 2097
- McDonald A.J. //Prog.Neurobiol. 1998, -V.55 N 3, p.257
- Olmos J.de, Ingram W.R. // J.Comp. Neurol. 1972, -V.146, N 2, p.303
- Pigache R. M. //Adv. Anat. Embryol. And Cell Biol. 1970, -V. 43, № 6, -p. 1
- Pitkanen A., Jolkkonen E., Kemppainen S. //Folia Morphol (Warsz). 2000. -V. 59, № 1, -p. 1.
- Schulteis G., Ahmed S.H., Morse A.C.et al. //Nature. 2000. -V. 405, № 6790. p. 1013
- Velasco J.M., Fernandez de M., Perez D. //Exp.Brain Res., 1989, V.74, №.1, p.163
- Zhuravin L.A., Tumanova N.L. XXXIII Int. Cong. Physiol. Sciences. 1997. -St.-Peterburg. -P. 072.07.
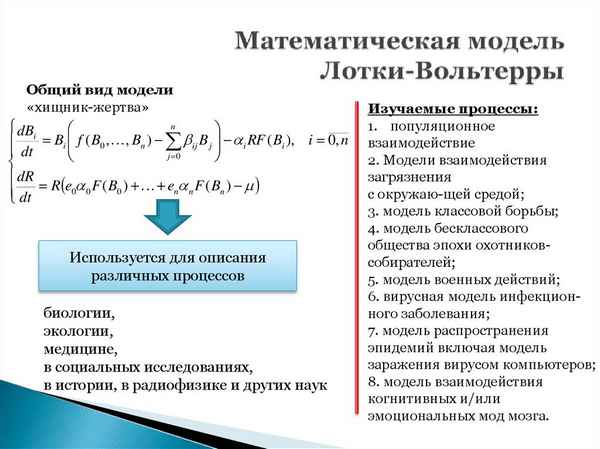 С помощью элементарных методов комбинаторной математики и единственности решений систем линейных алгебраических уравнений для невырожденных случаев доказана теорема о количестве и структуре особых точек n–мерной динамической системы популяционной динамики Лотки-Вольтерра. Показано, что количество особых точек для этой системы равняется 2n, а их структура в отношении сочетания нулевых и ненулевых координат совпадает с биноминальными коэффициентами. Сделано предположение, что с помощью этой динамической системы можно моделировать конкурентные взаимодействия среди n научных фронтов в рамках широкой области научных исследований.
...
18 10 2026 20:24:10
 Статья в формате PDF
155 KB...
17 10 2026 18:40:38
 Статья в формате PDF
59 KB...
16 10 2026 17:21:22
 Замачивание семян и опрыскивание вегетирующих растений томата растворами сочетаний витаминов: пантотеновая кислота–тиамин и фитогормонов: цитокинин–гибберелловая кислота, и совместным их сочетанием снижает токсическое действие хлоридного засоления, повышая всхожесть семян, рост проростков, стeбля, размеры листьев, интенсивность фотосинтеза и накопление общего белка. Наиболее эффективно во всех случаях комплексное сочетание витаминов с фитогормонами.
...
15 10 2026 12:10:34
 Статья в формате PDF
117 KB...
14 10 2026 23:37:48
 Статья в формате PDF
135 KB...
13 10 2026 8:42:12
 Статья в формате PDF
504 KB...
12 10 2026 0:37:53
 Статья в формате PDF
218 KB...
11 10 2026 6:13:32
 Статья в формате PDF
122 KB...
10 10 2026 5:37:16
 Статья в формате PDF
108 KB...
09 10 2026 20:10:24
 В статье представлен фрагмент авторской концепции теории патологического процесса. На примере становления хронического инфекционного процесса проведен анализ взаимоотношения основных причинных факторов, составляющих сложную структуру этиологии болезни.
...
08 10 2026 8:25:50
 Статья в формате PDF
115 KB...
07 10 2026 6:46:54
 Экспериментальная работа представлена с целью описания хаpaктеристик Солнечной системы с помощью существующих теорий. Числовые данные взяты из Интернета, теория – из электронных энциклопедий. Результаты исследований показали, что современная форма уравнений Дж. Максвелла позволяет вычислить отсутствующие фундаментальные константы и описывать гравитон подобно фотону. Закон всемирного тяготения И. Ньютона часть современной формы уравнений Дж. Максвелла – теперь гравитационной теории поля. «Квантово-волновые» свойства гравитона позволяют строить теорию Солнечной системы подобно стационарному уравнению Э. Шрёдингера. В статье формулы используются в чрезвычайных случаях, но графики и математическая статистика к ним широко используется. Рисунки и статистика наглядно демонстрируют силу теоретических законов. Предложенная теория показывает случайное совпадение, и ограниченность эмпирического правила Тициуса-Боде.
...
06 10 2026 16:38:33
 Изучены ценопопуляции Pulsatilla multifida на территории Юго-Западной и Западной Якутии. Рассмотрено влияние антропогенного фактора на их состояние
...
05 10 2026 5:52:48
 Нестандартные задачи в педагогической пpaктике создают благоприятные условия для качественной подготовки учащихся, быстрой адаптации в окружающем мире и малознакомых предметных областях, стимулируют самообразование, формируют научную картину мира и являются инструментом для расширения естественнонаучного кругозора учащихся.
...
03 10 2026 15:14:13
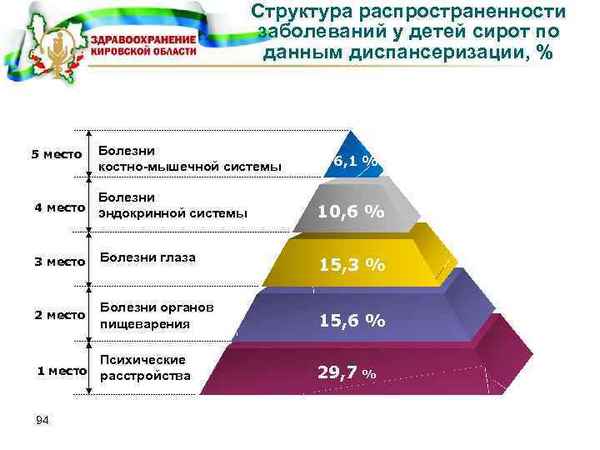 За 2011 год в Республиканском Центре здоровья для детей г. Чебоксары проведено обследование условно здоровых детей и подростков в возрасте 5–17 лет с помощью биоимпедансного анализатора состава тела АВС-01 «МЕДАСС» (n = 2419). Целью исследования работы явились оценка хаpaктера направленности питания, уровня физической подготовленности, физического развития. Были проанализированы следующие показатели: жировая масса (ЖМ), активно-клеточная масса (АКМ), доля активно-клеточной массы (доля АКМ), скелетно-мышечная масса (СММ). Выявленные нарушения в виде избытка ЖМ у 39,0 % обследованных свидетельствуют о риске развития ожирения, снижение белкового компонента питания у 28,5 % и уровня двигательной активности у 21,0 % обследованных свидетельствуют о нерациональности питания и риске развития хронических неинфекционных заболеваний, снижения репродуктивной функции.
...
02 10 2026 12:43:23
 Статья в формате PDF
407 KB...
01 10 2026 14:51:28
 Статья в формате PDF
364 KB...
30 09 2026 17:22:24
 Статья в формате PDF
262 KB...
29 09 2026 4:28:50
 В работе рассматривается процесс утилизации ртутьсодержащих соединений с использованием в качестве активного соединения кремния, что экономически более выгодно, чем использование порошкообразного титана. Рассматривается возможность миграции ртути в условиях возрастающей техногенной деятельности человечества.
...
28 09 2026 0:43:10
 Статья в формате PDF
111 KB...
27 09 2026 13:12:48
 Статья в формате PDF
262 KB...
25 09 2026 14:12:46
 Статья в формате PDF
275 KB...
24 09 2026 4:45:54
 Статья в формате PDF
268 KB...
23 09 2026 12:12:17
 Статья в формате PDF
484 KB...
22 09 2026 16:50:35
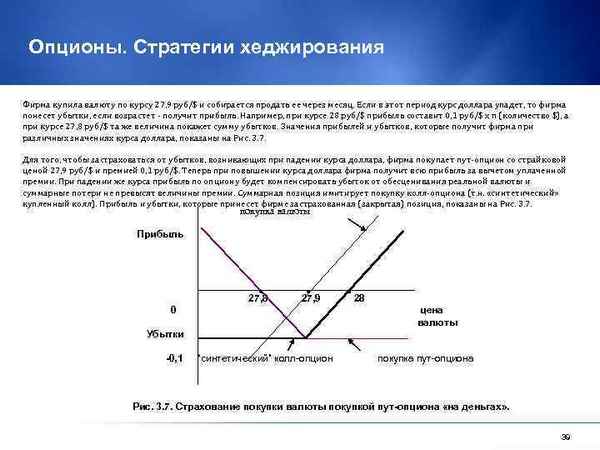 В данной работе предложен принципиально новый подход нахождения справедливой цены опциона европейского типа при условии дискретности хеджирования на эффективном рынке базового актива. Развитый подход позволяет определить стоимость опциона для достаточно широкого класса распределений цены базового актива, не ограничиваясь гипотезой о том, что распределение цен базового актива подчиняется логнормальному закону. Анализ полученных результатов позволил утверждать, что существуют такие состояния рынка, при которых осуществить хеджирование не предоставляется возможным. Данный эффект не находится в противоречии с теорией Блэка-Шоулза, т.к. конфигурация областей «нехеджируемости» вырождается в пустое множество при достаточно большом количестве актов хеджирования и достаточно малом промежутке времени между актами хеджирования
...
21 09 2026 9:21:34
 Статья в формате PDF
373 KB...
20 09 2026 1:54:19
 Статья в формате PDF
137 KB...
19 09 2026 0:15:55
 Обследовано 109 детей 8-15 лет с эрозивно-язвенными и неэрозивными формами гастродуоденальной патологии в динамике заболевания. В острой фазе заболевания при деструктивных формах поражения выявлена перестройка терминального русла, замедление кровотока во всех сосудах, сопровождающееся внутрисосудистой агрегацией эритроцитов, изменением их реологических свойств в сочетании с изменениями центральной гемодинамики. Установлена выраженная коррелятивная связь гемореологических нарушений с кислотообразующей и ощелачивающей функциями желудка.
...
18 09 2026 23:51:38
 Статья в формате PDF
134 KB...
17 09 2026 6:12:24
 Статья в формате PDF
102 KB...
16 09 2026 7:56:47
 Статья в формате PDF
280 KB...
15 09 2026 6:53:16
 Статья в формате PDF
264 KB...
14 09 2026 17:31:21
 Статья в формате PDF
115 KB...
13 09 2026 19:56:36
 Статья в формате PDF
110 KB...
12 09 2026 7:18:54
 Статья в формате PDF
127 KB...
11 09 2026 16:26:38
 Статья в формате PDF
114 KB...
10 09 2026 0:45:35
 Статья в формате PDF
135 KB...
09 09 2026 7:26:36
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::