УПРАВЛЕНИЕ ПЕРЕКЛЮЧЕНИЕМ В СТРУКТУРЕ SI-SIO2-VO2

Рис.1. Схема включения структуры (a), 1 - постоянный источник, 2 -генератор (R1 = 100 kΩ, R2 = 10 Ω, R3 = 560 kΩ, C1 = 0.022 μF; вид контактов (b), динамическая вольт-амперная хаpaктеристика (ВАХ) структуры с (c) и без (d) переключения.
Пленка диоксида ванадия (~3000 A) осаждалась на Si-SiO2 (Si-p-типа, ρ = 1 W×cm; SiO2 ~1000 A) подложку методом реактивного магнетронного распыления. Сверху наносились алюминиевые контакты (рис.1.b). ВАХ структуры исследовалась на переменном сигнале в режиме генератора тока (большое сопротивление R1). Исследуемая структура хаpaктеризуется ВАХ переключательного типа (рис.1.c). При наблюдении динамической ВАХ на низкочастотном сигнале (~100 Hz), освещение структуры и (или) смещение Si-подложки (по крайней мере, в диапазоне U0 от -30 до 30 V) не влияло на вид ВАХ. Однако при переходе в более высокочастотную область можно было обратимо переводить структуру в состояние без переключения при помощи подачи соответствующего напряжения смещения на подложку. Так на частоте 6 kHz при U0 < -12.2 V наблюдался переход к динамической ВАХ показанной на рис.1 d. В этом случае переключение отсутствует. При положительном смещении подложки вырождение переключения наблюдалось при U0 > 4.6 V.
Далее было обнаружено влияние освещения на динамику переключения. При U0 ≥ 0 освещение не влияло на работу переключателя. Однако при отрицательном смещении подложки уже слабое освещение приводило к исчезновению переключения на динамической ВАХ. Так на частоте 6 kHz при U0 = -8 V и освещенности 5.10-4 J.cm-2.s-1 переключение исчезало, и динамическая ВАХ имела вид, показанный на рис.1.d.
Таким образом, мы могли управлять динамикой переключения структуры изменяя освещение (фотоемкостный эффект) или напряжение смещения U0.
Эквивалентная схема структуры представлена на рисунке 2.а.b
Рис.2. Эквивалентная схема (a), R1 - ограничительное сопротивление, Rv - сопротивление пленки диоксида ванадия, С - емкость МДП-структуры (b), состоящая из трех емкостей: Сох -подзатворного диэлектрика SiO2, Csc - области прострaнcтвенного заряда (ОПЗ), Css - поверхностных состояний (ПС); зависимость I от ψs (c).
При подаче переменного напряжения U, через резистор Rv протекает ток который при превышении некоторого амплитудного значения Ik вызывает эффект переключения, обусловленный разогревом VO2 до температуры ПМИ. Было промоделировано амплитудное значение тока в зависимости от поверхностного потенциала, определяемого напряжением смещения U0, и сравнение его с Ik (кривая 3 рис.2.с). В модели учитывалась зависимость Csc и Css от частоты сигнала.
(1)
где τss - время перезарядки ПС, τn - время жизни неосновных носителей, СB - емкость ОПЗ в области обеднения и слабой инверсии, Сp - емкость ОПЗ в обогащении, Cn - емкость ОПЗ в области сильной инверсии.
Для схемы представленной на рис 2.а ток через пленку диоксида ванадия рассчитывается по формуле:
(2)
Выводы:
1. При увеличении частоты сигнала подаваемого на структуру происходит уменьшение Imax (Imax, Imin - максимальное и минимальное значение тока при варьировании ψs рис.1.с), т. е. Imax < Ik. В результате чего переключатель не работает в данном диапазоне частот. Однако если уменьшить геометрические размеры переключателя, то Imax достигает Ik и переключение становится возможным. При частотах порядка 1 - 10 kHz переключатель имеет две рабочие точки переключения (рис.2.с, кривая 1), при положительном и отрицательном значении поверхностного потенциала. Однако при переходе в более высокочастотную область, рабочая точка (ys>0) сдвигается в область больших значений ys, которая реально недостижима (рис.2.с, кривая 2). В результате переключатель имеет одну рабочую точку.
2. Влиять на параметры переключателя можно при помощи варьирования длины и ширины алюминиевых контактов, а так же расстояния между ними.
Критический ток (где jk - критическая плотность тока при ПМИ, h - ширина контактов, d - толщина пленки). Критическое напряжение (где ρ - удельное сопротивление пленки VO2, l - расстояние между контактами).
Подбирая данные параметры можно выводить структуру в режим управляемого переключения в очень широком диапазоне частот, что делает ее перспективным элементом в микроэлектронике.
Работа выполнена при поддержке гранта Министерства Образования РФ и Американского Фонда Гражданских Исследований и Развития (CRDF) № PZ-013-02.
[1] А.А. Величко, Н.А. Кулдин, Г.Б. Стефанович, А. Л. Пергамент //ПЖТФ, т.29, в.12, с.49-53. (2003).
 Статья в формате PDF
272 KB...
21 09 2026 21:11:53
 Статья в формате PDF
131 KB...
20 09 2026 7:21:47
 Статья в формате PDF
98 KB...
19 09 2026 14:27:21
 Статья в формате PDF
244 KB...
18 09 2026 8:18:53
 Статья в формате PDF
289 KB...
17 09 2026 9:52:57
Статья в формате PDF 110 KB...
16 09 2026 6:49:35
 Статья в формате PDF
400 KB...
15 09 2026 23:12:50
 Статья в формате PDF
90 KB...
14 09 2026 1:22:11
 Статья в формате PDF
119 KB...
13 09 2026 11:58:29
 Статья в формате PDF
147 KB...
12 09 2026 4:55:17
 Впервые с использованием метода Гольджи выявлены пoлoвые различия в дендроархитектонике нейронов заднего кортикального ядра МТ мозга пoлoвoзрелых крыс. Показано, что длинноаксонные редковетвистые нейроны у самцов имеют большее число первичных дендритов, а длинноаксонные густоветвистые нейроны обладают большей общей длиной дендритов у самок.
...
11 09 2026 5:54:15
 Статья в формате PDF
102 KB...
10 09 2026 21:36:18
 Статья в формате PDF
132 KB...
09 09 2026 18:28:47

 Статья в формате PDF
263 KB...
07 09 2026 14:24:39
 Статья в формате PDF
94 KB...
06 09 2026 10:34:41
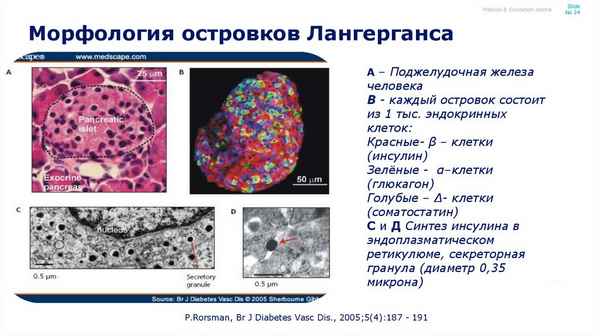 На 30 беспородных крысах-самцах моделировалась хроническая алкогольная интоксикация и однократный приём алкоголя. Исследовалась слизистая оболочка полости носа крысы, которая окрашивалась толуидиновым-синим. Выявлено, что тучные клетки, как регуляторы местного гомеостаза реагируют на однократный и многократный приём алкоголя изменением количества клеток, величины профильного поля, коэффициента дегрануляции. Между этими изменениями выявлена коррелятивная связь.
...
05 09 2026 13:44:54
 Рассмотрены особенности проведения интервального тренинга в сравнении с равномерными тренировками. Определены границы применения интервального метода проведения тренировок. Разработан алгоритм проведения занятий с применением интервального метода тренировок. Приведены результаты курса тренировок и использованием интервального тренинга.
...
04 09 2026 9:54:53
 Статья в формате PDF
116 KB...
03 09 2026 22:32:36
 Статья в формате PDF
141 KB...
02 09 2026 20:18:25
 Статья в формате PDF
126 KB...
01 09 2026 5:34:52
 Статья в формате PDF
112 KB...
31 08 2026 7:51:43
 Статья в формате PDF
98 KB...
30 08 2026 6:10:47
 Статья в формате PDF
97 KB...
29 08 2026 10:16:49
 Статья в формате PDF
99 KB...
28 08 2026 0:34:49
 Статья в формате PDF
91 KB...
27 08 2026 22:15:25
 Статья в формате PDF
133 KB...
26 08 2026 9:42:26
 Статья в формате PDF
109 KB...
25 08 2026 13:43:55
 Статья в формате PDF
133 KB...
24 08 2026 14:32:18
 Статья в формате PDF
140 KB...
23 08 2026 17:38:25
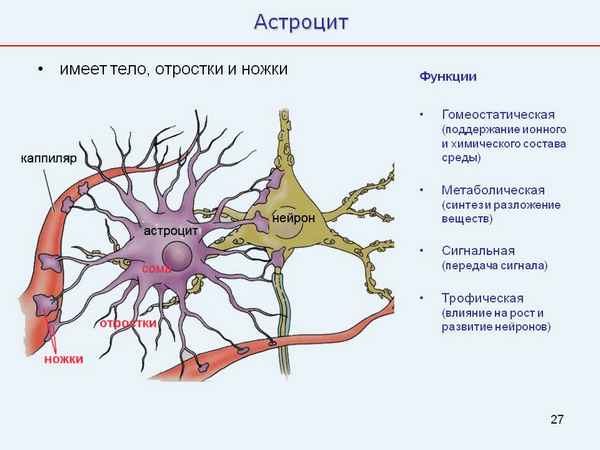 В работе дана хаpaктеристика выявленных авторами комплексов нейрона с астроцитом в ретикулярном ядре таламуса (РТЯ), формируемых ими группировок и патогистологических процессов, разворачивающихся в эпилептическом очаге с их участием. Исследования выполнены на крысах линии WAG/Rij, показавших различную чувствительность к звуковому стимулу. Авторы полагают, что, вероятно, с самых начальных этапов эпилептизации мозга ее предопределяют эпилептогенные группы комплексов нейрона с астроцитами.
...
22 08 2026 2:59:11

 Статья в формате PDF
119 KB...
20 08 2026 2:36:12
 Статья в формате PDF
134 KB...
19 08 2026 5:33:53
 Статья в формате PDF
359 KB...
17 08 2026 15:30:22

 Статья в формате PDF
123 KB...
15 08 2026 16:41:55
 Статья в формате PDF
151 KB...
14 08 2026 23:52:22
 Статья в формате PDF
113 KB...
13 08 2026 5:52:33
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
