Влияние «мышиного» токсина yersinia pestis на экспрессию профессиональных акцепторов апоптогенных сигналов

Цель настоящего исследования - оценка способности МТ Y. pestis индуцировать экспрессию рецепторов Fas (Fas R/ Apo CD 95), содержащих "домен cмepти", трaнcлирующий апоптозный сигнал на внутриклеточный аппарат апоптоза. Изучали экспрессию молекул CD 95 на поверхности Т-лимфоцитов, макрофагов и нейтрофилов мышей и морских свинок.
Исследования, проведенные с использованием моноклональных антител к CD 95, показали, что МТ в дозах, индуцирующих апоптоз (0,01 - 0.1 мкг/мл), существенно усиливает экспрессию CD 95 на поверхности Т-лимфоцитов, макрофагов и нейтрофилов мышей, особенно при индуцирующей дозе МТ - 0,001 мкг. Эффект наиболее выражен в отношении Т-лимфоцитов - 52,1 + 2,3% (контроль - 12,5 + 0.2 %), несколько ниже у макрофагов - 45,1 + 1,02 (контроль -8 + 0.25 %) и существенно слабее у нейтрофилов - 28,4 + 1,53% (контроль -17,7 + 0.64 %). Аналогичная закономерность отмечена на модели морских свинок. Процент экспрессии CD 95 на поверхности Т-лимфоцитов, макрофагов и нейтрофилов составлял соответственно: 30,8 + 0,95; 28,7 + 1,63; 24,2 + 0,95 при контролях: 7 + 0,15; 12,8 + 0,64 и 17 + 0,8 соответственно. Обращает на себя внимание, что способность МТ индуцировать экспрессию CD 95 на поверхности иммунокомпетентных клеток выражена сильнее при её изучении на модели мышей, чем морских свинок.
Приведенные результаты дают основание предполагать, что прием апоптогенного сигнала, индуцированного МТ, Т-лимфоцитами, макрофагами и нейтрофилами осуществляется через Fas R.
 Статья в формате PDF
276 KB...
31 10 2026 2:18:42
 Статья в формате PDF
138 KB...
30 10 2026 20:29:22
 Статья в формате PDF
92 KB...
29 10 2026 18:33:30
 Статья в формате PDF
221 KB...
27 10 2026 6:45:26
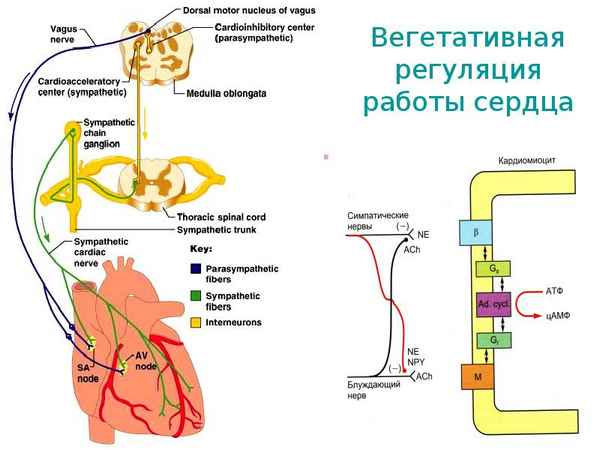 Цели исследования: определить нормальную динамику показателей вариабельности ритма сердца в ответ на физиологическую нагрузку у мужчин и женщин. Дать клинико-физиологическую оценку показателей.
Материалы и методы. Нами было обследованы 48 здоровых пациентов, из них 32 – мужчины, 16 – женщины. Средний возраст 46 (± 3,6) года. Исследование проводилось на комплексе суточного мониторирования ЭКГ «ДНК» с программой вариабельности сердечного ритма при проведении лестничных проб. Определяли: ЧСС ночью и на нагрузке, депрессию ST, параметры ОНЧ, НЧ, ВЧ, НЧ/ВЧ – как в покое, так и на нагрузке, SDNN и pNN50 за сутки.
Результаты. Обнаружено, что на нагрузках значительно повышается мощность ОНЧ (на 80,4%, t – 2,6) и синнергично снижается мощность НЧ (на 72%, t – 1,7) и ВЧ (на 65%, t – 1,6). Пoлoвых различий не выявлено (t – 0,8).
Заключение: показатель «ОНЧ» отражает реализацию синусовым узлом симпатических влияний. «ВЧ» отражают активность парасимпатической нервной системы (что соответствует литературным данным). Показатель «Низкие Частоты» не может служить маркером активности симпатической системы (как предлагается в литературе), а скорее отвечает за реализацию вагуса или иной тормозящей структуры. НЧ/ВЧ не может служить показателем вегетативного баланса.
...
26 10 2026 1:31:34
 Статья в формате PDF
100 KB...
25 10 2026 8:25:19

 Статья в формате PDF
89 KB...
23 10 2026 2:17:45
 Статья в формате PDF
243 KB...
22 10 2026 10:24:53
 Статья в формате PDF
117 KB...
21 10 2026 19:21:56
 Статья в формате PDF
148 KB...
19 10 2026 1:22:23
 Статья в формате PDF
290 KB...
18 10 2026 2:26:49

 Статья в формате PDF
601 KB...
15 10 2026 10:22:19
 Статья в формате PDF
137 KB...
14 10 2026 17:33:39
 Исторически развитие лесной таксации происходило на основе многовекового позитивного (для лесного хозяйства, также и для леса как экологической системы) опыта взаимодействия людей с деревьями.
Исходя из биотехнического принципа в лесной таксации, показана возможность моделирования возрастных распределений лесных деревьев по сортности бревен, экспертно назначаемых таксатором на стволе растущих деревьев подеревной глазомерной таксацией.
...
13 10 2026 8:26:56

 Статья в формате PDF
113 KB...
11 10 2026 15:23:34
 Статья в формате PDF
103 KB...
10 10 2026 19:14:47
 Статья в формате PDF
117 KB...
09 10 2026 13:20:28
 Статья в формате PDF
112 KB...
08 10 2026 11:11:42
 Статья в формате PDF
174 KB...
07 10 2026 19:39:32
Статья в формате PDF 133 KB...
06 10 2026 23:15:51
 Статья в формате PDF
832 KB...
05 10 2026 22:10:41
 Статья в формате PDF
143 KB...
04 10 2026 11:31:10
 Статья в формате PDF
129 KB...
03 10 2026 13:48:38
 Статья в формате PDF
109 KB...
02 10 2026 10:58:16
 Статья в формате PDF
126 KB...
30 09 2026 23:18:18
 Статья в формате PDF
110 KB...
29 09 2026 16:13:28
 Статья в формате PDF
115 KB...
28 09 2026 22:49:55
 Статья в формате PDF
121 KB...
27 09 2026 16:17:29
 Статья в формате PDF
89 KB...
26 09 2026 0:47:26
 Статья в формате PDF
183 KB...
25 09 2026 15:17:38
 Статья в формате PDF
108 KB...
24 09 2026 20:22:32
 Статья в формате PDF
114 KB...
22 09 2026 1:35:32
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
