АНТИВИТАМИН ПАНТОТЕНОВОЙ КИСЛОТЫ (ПИЗАМИН) В ВЫСШЕМ РАСТЕНИИ (БИОЛОГИЧЕСКАЯ РОЛЬ И МЕХАНИЗМ ДЕЙСТВИЯ) (монография)

В книге состоящей из 9 глав, изложенной на 225 страницах, имеющей 445 литературных источников, обобщен результат многолетних экспериментальных исследований впервые выделенного и изученного природного антивитаминного фактора пантотеновой кислоты (ПК) из проростков гороха, получившего условное название - пизамин. По физико-химическим свойствам идентифицирован как олигосахарид, По механизму действия связан с подавление каталитических функций КоА, который является биологически активным производным ПК. Впервые показано участие эндогенного антивитамина важнейшего витамина ПК в регуляции ростовых процессов в высшем растении. Представленные в монографии исследования можно считать важным дополнением и расширением путей регуляции активности КоА природным антивитаминным (антикоферментным) фактором - пизамином, как естественным эндогенным регулятором.
Важность представленных исследования вытекает из универсальности и широчайшего спектра метаболического действия антагонизируемого витамина, составной части кофермента ацетилирования (КоА), катализирующего около 130 важнейших реакций обмена веществ.
Во 2-й главе детально изложена собственной разработки технология выделения пизамина его физико-химические свойства и идентификация.
В 3-ей главе «Динамика образования, накопления и локализация пизамина в онтогенезе растений гороха» раскрываются закономерности образования и накопления антивитамина в органах растения в онтогенезе, начало образования и динамика накопления и распределения в связи с хаpaктером роста междоузлий. Хаpaктер их роста, скорость, продолжительность и конечные линейные размеры, являются следствием начала образования и интенсивности накопления в них ингибитора. Пизамин проявляет действие как ингибитор роста и его появление в междоузлиях осевых органов происходит de novo в процессе роста на определенном этапе онтогенеза растительной клетки, где он и проявляет действие, не трaнcпортируясь по растению.
Методом ингибиторного анализа с использованием ингибиторов трaнcкрипции и трaнcляции показано подавление образования пизамина, как олигосахарида. Известно, что образование олигосахаридов в растении обусловлено активностью глюканаз, участвующих в катаболизме полисахаридов клеточной стенки с образованием их биологически активных фрагментов. Поэтому подавление образование глюканаз ингибиторами, вызывает и подавление образования пизамина. Это позволяет предположить, что индукция включения процесса образования пизамина обусловлена эндогенной ситуацией различного генеза, индуцирующих экспрессию генетического кода, несущего информацию специфического белка-фермента, идентичного или родственного глюканазам, образующего пизамин, как олигосахаридного фрагмента клеточной стенки.
В 4-ой главе «Рост междоузлий проростков гороха в связи с содержанием в них эндогенного пизамина» раскрывается взаимоотношение в росте системы корень/стебель, при котором максимальное накопление пизамина и задержка роста нижних двух междоузлий обеспечивает в этот период быстрый рост и формирование корневой системы. Динамика и уровень накопления эндогенного пизамина в междоузлиях четко коррелирует с их дифференцированным линейным и ритмичным ростом.
Особенно важно то, что установлена четкая взаимосвязь между содержанием пизамина и содержанием активной ПК в процессе роста междоузлиях. При высоком содержании антивитамина и ограниченном линейном росте междоузлий, преобладает свободная неактивная форма витамина и, наоборот, преобладает связанная активная ПК. Однако общее содержание витамина не зависит от хаpaктера роста междоузлий, количество которого почти одинаково. Из этого следует, что подавление роста интактных междоулий эндогенным пизамином не связано с подавлением биосинтеза витамина, а он блокирует образование его связанной активной (фосфорилированной) формы, что может тормозить биосинтез КоА, приводящее к подавлению метаболических процессов, и как следствие, подавление роста. Полученные результаты позволяют считать пизамин эндогенным регулятором роста, действующим в клетке в качестве эффектора универсальной системы КоА и ацетил-S-КоА призводных. Это подтверждается более высоким содержание белка в междоузлиях с низким содержанием пизамина и интенсивным ростом, чем в закончивших рост и высоким содержанием пизамина.
В главе 5 показано, что экзогенный пизамин подавляет рост изолированных корней кукурузы и люцерны, изолированных суспензионных тканей женьшеня и диоскореи, митотического деления клеток апекса корней лука, синтез хлорофилла и интенсивность фотосинтеза. Изучено его взаимодействие с экзогенными фитогормонами ИУК и ГК на росте отрезков междоузлий проростков гороха и колеоптилей пшеницы, а также интактных растений гороха.
В главе 6 на изолированных корнях люцерны показана специфичность действия пизамина в отношении пантотеновой кислоты, действие которого инактивируется витамином и её биосинтетическим предшественником β-аланином. Поэтому он также как и сам витамин устраняет дефект функции КоА-SH, вызванный пизамином. Особенно доказательно в этом плане прямое влияние пизамина in vitro на ацетилирование КоА ПАБК, при котором обнаружена прямая зависимость ингибирования активности КоА от концентрации пизамина, так же как и снижение ингибирующего действия пизамина возрастающими концентрациями КоА-SH. Это позволяет считать пизамин ингибитором КоА, секвестирующего его свободную форму, с высокой биологической активностью.
В главе 7 показано, что пизамин специфично ингибирует рост дрожжевых культур, нуждающихся в экзогенной ПК. Установлен факт, адаптации дрожжей при последующих пересевах с возрастающими дозами пизамина с приобретением полной устойчивости, закрепляемой генетически и сохраняемой без контакта с пизамином до 10 лет. Такие адаптированные штаммы дрожжей обладают повышенной интенсивностью роста культуры, сокращенным лаг-периодом, повышенным синтезом и накоплением белка, усилением интенсивности брожения, накоплением БАК, стимулирующих как рост дрожжей, так и вызывающих инактивацию пизамина. Устойчивость дрожжей к пизамину обусловлена усиленным синтезом и накоплением глутатиона, естественного антиоксиданта, пpaктически полностью инактивирующего пизамин.
Важным разделом монографии в изучение антивитаминых функций пизамина является глава 8, в которой раскрываются взаимодействия пизамина с метаболитами и антиметаболитами, где раскрыты специфика эндогенных и экзогенных взаимоотношений пизамина с метаболитами и антиметаболитами, функционально и биохимически связанными с КоА. Весьма интересным оказалось усиление антивитаминного действия пизамина аспарагином в присутствии ПК, что было впервые установлено для антагонистов ПК. Причем, такое усиление наблюдалось и для другого витамина - биотина, функционально связанного с КоА. Весьма специфично оказалось взаимодействие пизамина с протеиногенными аминокислотами, разделившихся по хаpaктеру взаимодействия на 3 группы: усиливающие его ингибирующую активность, подобно аспарагину, которые в его присутствии не проявляют такого эффекта; инактивируют его действие и нейтральные. В группу инактиваторов входят серосодержащие аминокислоты цистеин, цистин и метионин инактивирующих пизамин как в присутствии ПК, также и при замене её эквимолярной концентрацией β-аланина. Это служит доказательством антагонизма с ПК, не затрагивающего процесс пантотенаткиназной системы биосинтеза витамина. Инактивация цистеином, циститом и метионином, легко превращаемого в цистеин, несущих SН-группы, участвующие в биосинтезе КоА, указывает на связь механизма антиметаболического действия пизамина с КоА. Однако хаpaктер взаимодействия пизамина с SH-соединеиями имеет более сложный и дифференцированный хаpaктер. Естественный предшественник биосинтеза КоА SH-пальмитоилпан- тетеин, не влияет на активность пизамина, тогда как другой предшественник S-бензоил-пантетеин, усиливает ингибирующий эффект пизамина, являясь и сам ингибитором роста тестовой культуры дрожжей, создавая с пизамином синергический эффект. Аналогичное действие установлено и для β-меркаптоэтиламина, предшественника и компонента КоА. Такой эффект объясняется возможным образованием дисульфидов между SH-КоА и SH-группами соединений, что препятствует взаимодействию пизамина с коферментом. Специфичность связи пизамина с этими соединениями подтверждается полным отсутствием реакции пизамина на присутствие унитиола, содержащего две SH-группы, не связанного с метаболизмом КоА. Из всех серосодержащих соединений самым активным в инактивации пизамина является глутатион природный антиоксидант, как в окисленной, так и в восстановленной форме.
Впервые для антивитаминных факторов при изучении природных антивитаминов, показано взаимодействие пизамина с природными и синтетическими антивитаминными факторами ПК (сорбиновая и салициловая кислоты) и биотна (авидин, и этилдестиобиотин и 6-(-2-оксогексагидро-4-пиримидил)-гексановая кислота), при котором во всех случаях четко проявляется эффект синергизма..
В заключительной 9-ой главе представлено антивитаминное действие пизамина в животном организме. Приведены факты распространения антивитаминных факторов в растительной пище. Особенно показательно демонстрируется изучение специфичности пизамина как антивитаминного фактора ПК на белых мышах и крысах. Введение подкожно 0,1 г/кг пизамин вызывает типичные симптомы пантотеновой недостаточности, нарушает метаболические процессы, связанные с каталитическими функциями КоА, что является свидетельством того, что в основе механизма антивитаминного действия пизамина лежит взаимодействие с функцией КоА-SH.
В работе развивается новая концепция возможной регуляции ростовых процессов растений путем управления типовых реакций обмена веществ через Ко-А, ключевого участника процессов регуляции метаболизма развивающейся клетки.
Содержание монографии представляет интерес для специалистов и преподавателей физиологии и биохимии растений, растениеводов, а также микробиологов, фармакологов, студентов и аспирантов биологических и сельскохозяйственных специальностей ВУЗов.
 Статья в формате PDF
163 KB...
20 11 2026 16:27:35
 Статья в формате PDF
110 KB...
19 11 2026 21:25:16

 Статья в формате PDF
251 KB...
17 11 2026 18:14:48
 Статья в формате PDF
250 KB...
16 11 2026 17:26:43
 Статья в формате PDF
254 KB...
15 11 2026 3:49:11
 Статья в формате PDF
212 KB...
14 11 2026 20:38:42
 Статья в формате PDF
113 KB...
13 11 2026 0:51:18
 Статья в формате PDF
285 KB...
12 11 2026 2:34:47
 Статья в формате PDF
1797 KB...
11 11 2026 10:27:48

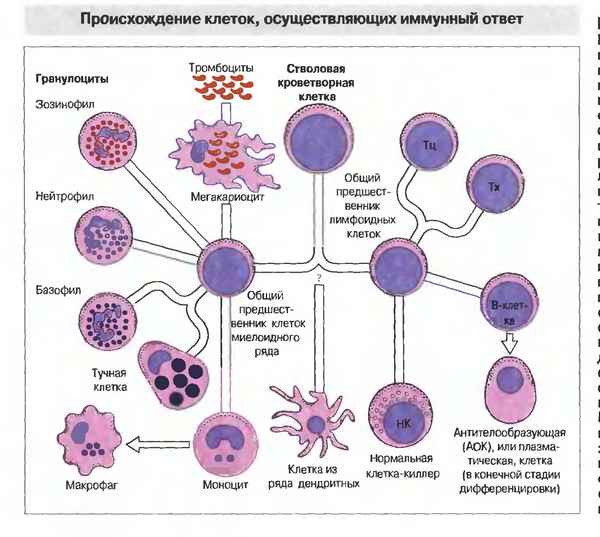
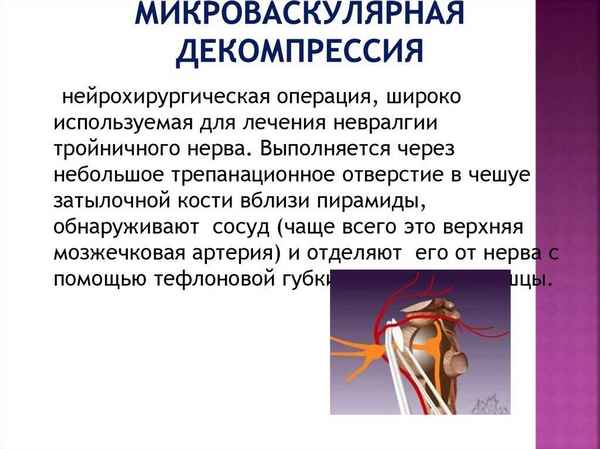 Был изучен нутритивный профиль у 55 больных накануне операции микроваскулярной декомпрессии корешка тройничного нерва и в течение первых пяти суток раннего послеоперационного периода. Больные были распределены в две группы, разница в интенсивной терапии между которыми заключалась в использовании парентерального питания до того момента, когда пациент самостоятельно не начинает адекватно питаться и принимать жидкость. Изучались такие параметры, как абсолютное число лимфоцитов, уровни общего белка, альбумина и трaнcферрина плазмы крови. Было достоверно доказано положительное влияние на исходно скомпрометированный нутритивный статус проведения парентерального питания в раннем послеоперационном периоде после данной разновидности нейрохирургических вмешательств.
...
09 11 2026 18:16:40
 Статья в формате PDF
255 KB...
08 11 2026 16:56:50
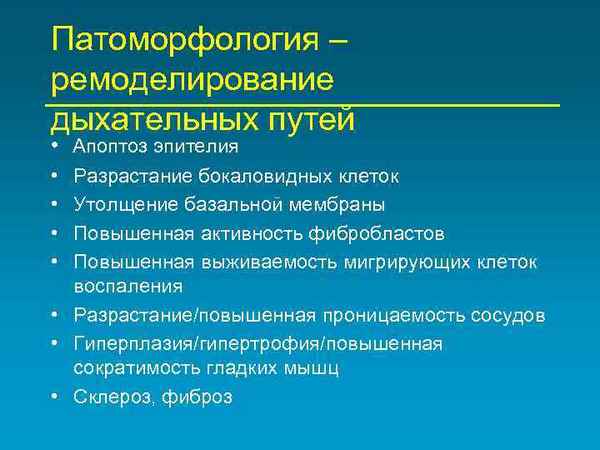 Изучено влияние низкоинтенсивного лазерного излучения (НИЛИ) красного и инфpaкрасного спектров на структурно - функциональное состояние слизистой оболочки верхних дыхательных путей ( ВДП) у детей в дошкольных образовательных учреждениях (ДОУ). Полученные результаты исследований позволили обосновать применение НИЛИ для коррекции нарушений местных факторов защиты. Низкоинтенсивная лазерная реабилитация (НИЛР) обеспечила нормализацию и повышение цитофизиологических показателей, и снижение цитопатологических величин. Доказано ремоделирующее действие НИЛИ на слизистую оболочку верхних дыхательных путей. Эффективность НИЛР связана с ремоделированием слизистой оболочки ВДП.
...
07 11 2026 21:22:11
 Статья в формате PDF
251 KB...
06 11 2026 14:11:40
 Статья в формате PDF
115 KB...
05 11 2026 22:32:16
Статья в формате PDF 256 KB...
04 11 2026 11:23:25
 Статья в формате PDF
114 KB...
03 11 2026 17:18:59
 Статья в формате PDF
215 KB...
02 11 2026 12:17:44
 Статья в формате PDF
105 KB...
01 11 2026 16:49:57
 Статья в формате PDF
145 KB...
31 10 2026 18:31:26
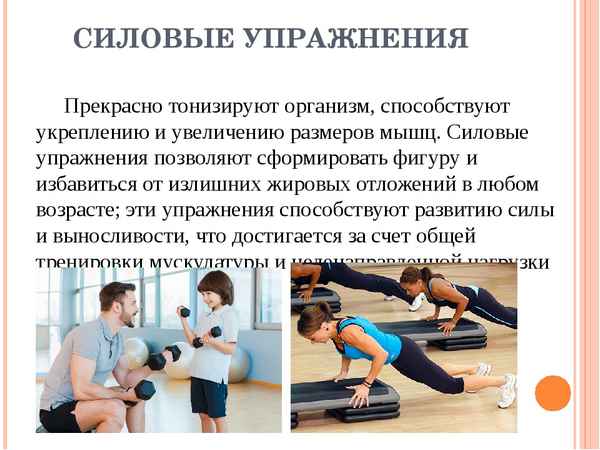 Рассмотрены особенности проведения интервального тренинга в сравнении с равномерными тренировками. Определены границы применения интервального метода проведения тренировок. Разработан алгоритм проведения занятий с применением интервального метода тренировок. Приведены результаты курса тренировок и использованием интервального тренинга.
...
30 10 2026 19:30:56
 Статья в формате PDF
110 KB...
29 10 2026 17:28:57
 Статья в формате PDF
112 KB...
28 10 2026 5:39:13
 Статья в формате PDF
114 KB...
27 10 2026 16:29:35
 Статья в формате PDF
111 KB...
26 10 2026 7:40:55
 Статья в формате PDF
267 KB...
25 10 2026 16:33:58
 Статья в формате PDF
124 KB...
24 10 2026 19:26:48


 Статья в формате PDF
110 KB...
21 10 2026 0:48:34
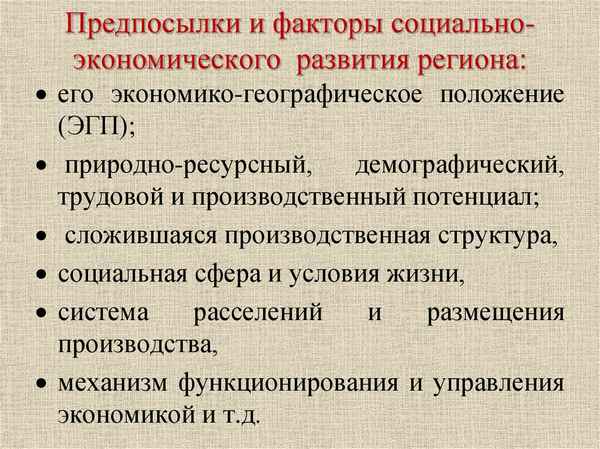
 В статье отмечается возрастающее значение научных исследований социальной инфраструктуры. Рассматриваются различные подходы к определению этого понятия, а также роль социальной инфраструктуры в формировании уровня жизни человека и развитии человеческого потенциала.
...
20 10 2026 21:48:54
 Статья в формате PDF
120 KB...
19 10 2026 10:28:49
 Статья в формате PDF
89 KB...
18 10 2026 10:36:33
 Статья в формате PDF
136 KB...
17 10 2026 5:59:33
 Статья в формате PDF
304 KB...
16 10 2026 15:57:17
 Статья в формате PDF
113 KB...
14 10 2026 3:42:47
 Статья в формате PDF
104 KB...
13 10 2026 11:16:12
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
