ВЛИЯНИЕ ОККЛЮЗИИ СОННЫХ АРТЕРИЙ НА ГЛУТАТИОНОВУЮ СИСТЕМУ КРЫС С РАЗНЫМ ЛАТЕРАЛЬНЫМ ПРОФИЛЕМ

Одной из важнейших медицинских и социальных проблем последних десятилетий являются острые и хронические нарушения мозгового кровообращения (НМК). Высокая летальность и инвалидизация больных с сосудистыми заболеваниями головного мозга обусловливает особую актуальность изучения патогенеза ишемических нарушений мозга. Одним из основных повреждающих факторов в условиях НМК является развивающийся в мозге окислительный стресс. В связи с этим, не теряет актуальности выявление критериев устойчивости организма к окислительному стрессу при ишемии мозга.
Целью данного исследования явилось исследование взаимосвязи показателя выживаемости и активности ферментов антиоксидантной защиты в головном мозге крыс с разным латеральным профилем, находящихся в условиях окклюзии сонных артерий разной продолжительности.
Латеральный профиль животных определяли с использованием Y-образного лабиринта (Ефимов с соавт., 1987). Активность глутатион-S-трaнcферазы (Г-S-Т), глутатионпероксидазы (ГП), глутатионредуктазы (ГР) и содержание восстановленного глутатиона (ВГ) определяли в структурах мозга (гемисфера коры и стволовые структуры правой и левой половин мозга) (Арутюнян, 2000). Окклюзию сонных артерий (СА) моделировали путем 3-минутной перевязки правой сонной артерии (ПСА) и 24-часовой окклюзии левой сонной артерии (ЛСА), либо 3-минутной перевязки ЛСА и 24-часовой окклюзии ПСА (W.A. Pulsinelli, 1987).
Исследование проводилось на 60 крысах линии Вистар массой 200-250 гр, которых разделяли на следующие группы:
1) ложнооперированные крысы с леволатеральным профилем (ЛЛП) (контрольная группа) (n=10);
2) ложнооперированные крысы с праволатеральным профилем (ПЛП) (контрольная группа) (n=10);
3) животные с ЛЛП, которым моделировали 3-минутную окклюзию ЛСА и 24-часовую окклюзию ПСА (n=10);
4) животные ЛЛП с 3-минутной окклюзией ПСА и 24-часовой окклюзией ЛСА (n=10);
5) животные с ПЛП, которым моделировали 3-минутную окклюзию ПСА и 24-часовую окклюзию ЛСА (n=10);
6) животные ПЛП с 3-минутной окклюзией ЛСА и 24-часовой окклюзией ПСА (n=10).
В результате проведенного исследования было показано, что после НМК процент выживаемости животных с ЛЛП был значительно выше, по сравнению с правополушарными крысами. В том числе, показатель выживаемости левополушарных животных 3-й группы составил 80%, 4-й группы - 70%; 5-й группы - 60%; 6-й группы - 50%. Возможно, различия в выживаемости животных при окклюзии сонных артерий связано со степенью нарушения мозгового кровообращения со стороны доминирующего полушария, а также с большей интенсификацией перекисных процессов в мозге крыс с ПЛП при НМК. Данное предположение было подтверждено исследованием состояния глутатионовой системы животных с разным латеральным профилем в условиях НМК.
В ходе эксперимента было установлено, что в мозге контрольных групп животных с разным латеральным профилем существуют различия в активности фермента Г-S-Т. У правополушарных крыс активность этого фермента была значительно ниже, чем у животных с ЛЛП. Также у крыс 1 и 2 групп выявлены межполушарные различия и в активности ГП: у правополушарных животных активность ГП выше в левой, а у крыс с ЛЛП - в правой гемисфере коры.
При двусторонней окклюзии СА у крыс 3 и 4 групп активность Г-S-Т в мозге уменьшилась по сравнению с контролем. В 3 группе активность Г-S-Т оказалась ниже в правой гемисфере коры на -43% (p<0.05), левой гемисфере коры - на -60% (p<0.05), правых стволовых структурах - на -67% (p<0.05), левых стволовых структурах - на -32% (p<0,05). В 4 группе активность Г-S-Т понизилась по отношению к контролю в правой гемисфере коры на -44% (p<0,05), левой гемисфере коры - на -44% (p<0,05), правых стволовых структурах - на -40% (p<0,05), левых стволовых структурах - на -62% (p<0,05). Но при этом активность ГП в мозге крыс 3 и 4 групп возросла по сравнению с интактными животными. Возможно, это является следствием того, что при ишемии головного мозга повышается уровень внутриклеточного Са2+, формируется закисление среды (ацидоз), в результате чего активируется фосфолипаза А2, подавляющая активность Г-S-Т (т.к. накапливаются свободные жирные кислоты). Это способствует включению ГП в процесс детоксикации липоперекисей (Меньщикова, 2006).
Напротив, в мозге крыс 5 и 6 групп активность Г-S-Т увеличилась. В том числе, в правой гемисфере коры 5 группы животных активность Г-S-Т возросла на +57% (p<0,05), левой гемисфере коры - на +61% (p<0,05), правых стволовых структурах - на +91% (p<0,05), левых стволовых структурах - на +84% (p<0,05) по сравнению с контролем. В 6 группе активность Г-S-Т была выше контрольного уровня в правой гемисфере коры на +48% (p<0,05), левой гемисфере коры - на +43% (p<0,05), правых стволовых структурах - на +84% (p<0,05), левых стволовых структурах - на +90% (p<0,05). В то же время активность ГП в 5 и 6 группах уменьшилась по отношению к контролю.
Кроме того, при двусторонней окклюзии СА активность глутатионредуктазы (ГР) у крыс с разным латеральным профилем уменьшилась по сравнению с интактными животными, за исключением 5 группы, где активность этого фермента возросла в правых стволовых структурах относительно контроля на +325% (р<0,01).
Известно, что пониженная активность ГП и ГР может являться следствием нарушения синтеза этих ферментов в эндоплазматическом ретикулуме. Продукты перекисного окисления липидов (ПОЛ) снижают активность ряда ферментов (трaнcметилазы, глюкозо-6-фосфатдегидрогеназы, гексокиназы и др.), необходимых для нормального функционирования ГП и ГР (Колесниченко, 1989).
Кроме того, было выявлено, что у крыс с разным латеральным профилем активность ГР ниже в гемисфере коры и стволовых структурах со стороны хронической окклюзии СА. Тогда как, со стороны переходящей окклюзии СА в структурах мозга активность ГР была достоверно выше. Активность ГП у крыс с ЛЛП и ПЛП также была увеличена в полушарии со стороны 3-минутной окклюзии СА. Таким образом, была установлена положительная корреляционная взаимосвязь между изменениями активности ГР и ГП. Кроме того, в структурах мозга, где понижалась активность ГР истощалось содержание восстановленного глутатиона (ВГ). А, поскольку ВГ является субстратом для действия ГП, то уменьшение активности глутатионпероксидазы, вероятно, приводит к недостаточной утилизации Н2О2, что способствует дальнейшему развитию окислительного стресса.
Таким образом, в ходе исследования были выявлены некоторые критерии большей устойчивости к НМК животных с ЛЛП по сравнению с правополушарными. В том числе, обнаружены межполушарные различия в активности Г-S-Т и ГП у ложнооперированных крыс с ЛЛП и ПЛП. В условиях окклюзии СА у левополушарных животных при уменьшении активности Г-S-Т в процесс детоксикации липоперекисей включается ГП, а у крыс с ПЛП увеличение активности Г-S-Т сопровождается снижением активности ГП. При этом активность ГР в мозге крыс с разным латеральным профилем уменьшается по сравнению с контролем (за исключением правых стволовых структур 5 группы). Между изменением активности ГР и ГП, а также содержанием ВГ установлена положительная взаимосвязь. В структурах мозга животных со стороны хронической окклюзии СА происходит большее снижение активности глутатионовой системы по сравнению с ипсилатеральными структурами.
 Статья в формате PDF
129 KB...
21 09 2026 4:47:11
 Статья в формате PDF
329 KB...
20 09 2026 4:31:14
 С помощью метода инфpaкрасной спектроскопии осуществлено сравнение вторичных структур глюкоамилаз из Aspergillus awamori и Saccharomyces cerevisiae. Получены данные о типах вторичной структуры, количественном соотношении упорядоченных и нерегулярных участков.
...
19 09 2026 1:42:14
 Статья в формате PDF
359 KB...
18 09 2026 13:11:23
 Статья в формате PDF
106 KB...
17 09 2026 22:16:56
 Статья в формате PDF
104 KB...
15 09 2026 21:32:57

 Статья в формате PDF
102 KB...
13 09 2026 20:53:59
 Статья в формате PDF
322 KB...
11 09 2026 3:44:58
 Статья в формате PDF
111 KB...
10 09 2026 14:41:12
 Статья в формате PDF
258 KB...
09 09 2026 7:29:59
 К настоящему времени геофизика накопила о магнетизме Земли огромную информацию, большая часть которой получена в новейший период исследований космического прострaнcтва путём непосредственных инструментальных исследований с помощью космических летательных аппаратов, но построить на традиционных теоретических основаниях общепризнанную теорию о происхождении магнетизма Земли пока не удавалось никому [1].
Учитывая продуктивность магнитодинамического взгляда ряда фундаментальных проблем физики и многочисленных технических задач [2], можно надеяться на аналогичную продуктивность при рассмотрении некоторых из многочисленных аспектов фундаментальной проблемы стационарного геомагнетизма, среди которых первичной представляется его происхождение.
...
08 09 2026 11:26:58
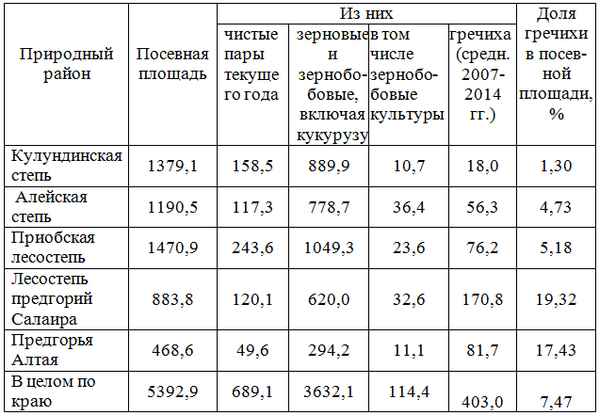 Алтайский край разнообразен по рельефу, климату и почвам. Включает 5 природных зон – от сухой степи до увлажнённых предгорий. Гречиха посевная выращивается на всей территории края, однако её посевы наиболее продуктивны в условиях лесостепи, что связано с природными ресурсами и развитым пчеловодством. Применение зонального агротехнического комплекса в лесостепи позволяет получать высокий урожай зерна (1,5–2,0 т/га).
...
07 09 2026 15:54:49
 Статья в формате PDF
110 KB...
05 09 2026 6:59:16
 Статья в формате PDF
232 KB...
04 09 2026 4:35:34
 Статья в формате PDF
291 KB...
03 09 2026 10:12:57
 Статья в формате PDF
132 KB...
02 09 2026 17:58:49

 Статья в формате PDF
112 KB...
31 08 2026 16:31:51
Статья в формате PDF 327 KB...
30 08 2026 0:11:45

 Статья в формате PDF
303 KB...
28 08 2026 20:56:37

 Статья в формате PDF
250 KB...
26 08 2026 1:37:23
 Статья в формате PDF
127 KB...
24 08 2026 13:34:22
 Статья в формате PDF
117 KB...
22 08 2026 6:52:13

 Статья в формате PDF
153 KB...
20 08 2026 8:36:15
 Статья в формате PDF
109 KB...
18 08 2026 9:20:13
 Статья в формате PDF
104 KB...
16 08 2026 12:35:43

 Статья в формате PDF
116 KB...
14 08 2026 14:15:27
 К концу ХХ века накопилось огромное количество фактов и доказательств научной несостоятельности постулатов теории относительности (ТО), положенных в основу физических представлений о структуре микро- и макромира. ТО оторвала науку от изучения природных взаимосвязей, подменив их уравнениями с некими значками без чёткого понимания их сущности: масса, заряд, магнетизм и т.д. Игнорирование законов Природы привело человечество к цивилизационному кризису – нарушено равновесие биосферы. Причина глобальных изменений состоит в том, что антропогенное производство энергии в десятки раз превышает допустимый по законам межсистемного обмена порог. Продолжение технократического развития – тупик, катастрофа. Необходимо новое естествопонимание на основе аксиомы: «Мир построен системно». Структура материального мира определяется взаимодействием непрерывной не материальной вихреобразной среды и дискретных образований материи – элементарных частиц, из которых закономерно и системно построено всё от атомов до звёзд и галактик.
...
13 08 2026 17:37:30
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
