ПРОБЛЕМА АДАПТИВНОЙ МОДИФИКАЦИИ СОВРЕМЕННЫХ КАСПИЙСКИХ ОСЕТРОВЫХ (ПАТОМОРФО ФУНКЦИОНАЛЬНЫЕ ИССЛЕДОВАНИЯ)
В истории развития патологии, как и любой области знаний, можно выделить ряд этапов, связанных с выдвижением различных концепций по результатам исследований, анализа клинических и патоморфологических данных, предшествующего опыта, с учетом задач на перспективу. В настоящее время выдвинуты новые концептуальные положения, одним из которых является рассмотрение процесса патологических нарушений как функционального расстройства систем организма на единой морфологической основе. Именно с этих позиций в течение 20 лет нами изучались патологические нарушения в организме каспийских осетровых, испытывающих антропогенный прессинг. Все деструктивные явления оценивали согласно классификации, разработанной в патологии [11, 12].
Целью настоящей работы было изучение кинетики патоморфологических изменений в печени, скелетных мышцах и других внутренних органах осетровых. По результатам обследования более 1000 экз. осетра, севрюги и белуги получены данные о динамике патологических изменений и регенерации, отражающие адаптационные возможности рыб на популяционном уровне. Установлено, что все изменения во внутренних органах обследованных рыб имеют неспецифическую форму проявления (в виде белковой и жировой дистрофии, воспалительных инфильтратов вокруг сосудов, нарушения микроциркуляции крови, локального некробиоза и некроза) и различную тяжесть.
Все деструктивные явления сопровождались накоплением липидов и фосфо-липидов, снижением содержания рибо- и дезоксинуклеопротеидов (РНП, ДНП). Функциональные изменения происходили на фоне тканевой гипоксии.
Наиболее выраженные деструктивные изменения в тканях рыб наблюдали с 1982 по 1990 гг. В печени были зарегистрированы изменения различной тяжести - от сосудистых расстройств и воспаления до локального некробиоза и некроза. В мышцах отмечались дистрофические явления и более тяжелые формы деструкции - от исчезновения хаpaктерной для скелетной мускулатуры поперечно-полосатой исчерченности до расслоения мышечных пучков и фрагментации миофибрилл. Эти нарушения были распространены очень широко. Так, у 20% особей они были тяжелыми, у 60% - умеренными, в органах 19% особей зарегистрированы начальные изменения, и только у 1% особей нарушений не было (условная норма). По мере развития деструктивных нарушений увеличивалось количество гистохимически выявляемых липидов и фосфолипидов и уменьшалось количество РНП и ДНП.
Во второй период исследований (с 1995 по 2000 гг.) заметно возросло число особей без патологических нарушений, и в отдельные годы их было более 50%. Заметно сократилось количество особей с умеренными изменениями (до 15%), и совершенно не встречались рыбы с тяжелыми морфофункциональными нарушениями. В данный период у осетровых регистрировались признаки локальной регенерации в виде двуядерных клеток (митоз), а также изменение количества липидов, фосфолипидов, РНП и ДНП до уровня условной нормы. Вместе с тем позитивные морфофункциональные изменения в печени и мышцах отмечались на фоне ослабления метаболизма, тканевой гипоксии (как аэробного дыхания - уменьшение содержания сукцинатдегидрогеназы и цитохромоксидазы, так и анаэробного гликолиза - снижение уровня лактат-дегидрогеназы).
Указанные морфофункциональные изменения в организме осетровых обнаруживались в последние 20 лет. Не исключено, что эти явления имели место и в 60-70-е годы, когда нередко наблюдались случаи массовой гибели осетровых в Волго-Каспийском бассейне. В связи с этим важно объяснить смысл таких изменений. По традиционной классификации в патологии липиды в клетках накапливаются по мере развития тяжести нарушений. Наши наблюдения показали, что патологические нарушения во внутренних органах существуют без видимых клинических (поведенческих) проявлений. Мы полагаем, что увеличение содержания липидов, вероятно, есть не только следствие нарушения метаболизма, но и защитная реакция, суть которой состоит в использовании липидов в качестве источника энергии при длительных функциональных нагрузках, каковыми являются деструктивные процессы в тканях. С этой точки зрения накопление общих липидов в клетках можно расценивать как компенсаторно-защитную реакцию, физиологический смысл которой заключается в поддержании местного и общего гомеостаза и создании необходимых условий для регенерации в тканях и адаптации организма. При этом энергетически более затратный анаэробный путь метаболизма, по-видимому, необходим для поддержания постоянства внутренней среды. То же касается и фосфолипидов, но увеличение их содержания, возможно, также связано с деструктивными процессами, при которых высвобождаются структурные фосфолипиды, входящие в состав мембран и обеспечивающие прочность последних. Проверка высказанных предположений требует специальных исследований с применением биофизических и электронно-микроскопических методов анализа.
На фоне тех же деструктивных явлений в тканях уменьшение количества макромолекул РНП в печени свидетельствует о нарушении синтеза белков и снижении активности ферментов. Именно в обратимости белокобразовательной функции печени, мы полагаем, и заключаются процессы регенерации, преобладающие во внутренних органах осетровых в последние 10 лет. Данное положение подтверждается тем обстоятельством, что регенерация и патологические процессы в печени и других внутренних органах происходили одновременно. Следовательно, деструктивные и регенерационные явления в печени индуцируют таковые в других органах. Кроме того, печень следует признать модулятором восстановления морфофункциональных нарушений еще и потому, что доказана ее высокая способность к регенерации [7]. Выдвинутые нами предположения согласуются с концепцией функциональной системы, в которой различные нарушения и являются толчком к восстановлению. Это также соответствует положению о единстве патологических нарушений и регенерации [4, 13].
Но существуют ли механизмы регенерации системного плана? В этой связи представляет интерес гипотеза о существовании системы, обеспечивающей в организме межклеточные коррелятивные связи, что в принципе отличает ее от нейрогумopaльной регуляции физиологических процессов, получившей название креаторной системы [6]. По мнению Г.И. Косицкого и Г.Г. Ревича, регуляция осуществляется с помощью сложных белков-сигнализаторов и белков-рецепторов, изучение которых выдвигается в качестве одного из перспективных направлений в патологии XXI века. Продолжая рассмотрение регенерации в печени, вновь сошлемся на фактические данные вышеупомянутых авторов, на основании собственных исследований и анализа научной информации доказавших связь эритропоэза в печени с регенерацией и, в частности, с процессами пролиферации гепатоцитов.
По нашим наблюдениям, регенерация в печени сопровождается увеличением содержания РНП и ДНП, что косвенно свидетельствует о восстановлении белоксинтезирующей функции печени осетровых. Именно это обстоятельство согласуется с принципом неразрывной связи структуры и функции. Следовательно, можно считать устаревшим взгляд на кинетику патологических нарушений как на последовательность изменений - сначала на молекулярном, затем на клеточном и субклеточном уровнях организации. Не в последовательности, а в единстве физиологической регенерации с морфологической изменчивостью (гетероморфия) в новой прострaнcтвенной организации структурных элементов (гетерокинезис), присущей субклеточному, клеточному и тканевому уровням [4], следует рассматривать патогенез и репарацию в свете современных достижений в этой области знаний.
Таким образом, обобщая сказанное, следует отметить, что самоиндукция репарации гепатоцитов не абсолютна, а, возможно, через креаторную систему функционально коррелирует с другими органами и системами, например, кроветворной. Анализируя кинетику патологических нарушений в печени, мы обратили внимание на индуцирующий эффект деструктивных изменений. Например, прогрессирующие патологические изменения в печени, наблюдавшиеся в 1982-1986 гг., в итоге привели к широкому распространению у осетровых расслоения мышц спины. На этапе регенерации с 1990 г. и до настоящего времени тяжесть деструктивных изменений в печени, мышцах и гонадах заметно снизилась. На этом основании с определенной уверенностью печень следует считать одним из важнейших органов, от структурно-функционального состояния которого зависит функционирование других систем при токсикозах.
Одним из сложных вопросов в экологии животных является изучение связи патологических нарушений с загрязнением химическими веществами внешней среды. По нашим данным, действительно, наблюдалась корреляция метаболизма и деструктивных процессов с содержанием ДДТ, ГХЦГ и тяжелых металлов во внутренних органах обследованных рыб, но хаpaктер и сила связи не зависели от уровня накопления токсикантов [5]. На этом основании можно считать доказанным факт асинхронности накопления токсикантов и возникновения патологических нарушений. К этому важно добавить, что количество загрязняющих водоемы веществ значительно превышает число определяемых в лабораториях. Кроме того, широко известны фактические данные о химической трaнcформации токсикантов, особенно органической природы, как во внешней среде, так и в организме рыб. В результате таких превращений изменяются исходные свойства токсических соединений. Поэтому токсический фактор принято считать случайным по ритму и силе воздействия, что не позволяет организму адаптироваться [9]. Видимо, только этим можно объяснить распространение патологических нарушений у осетровых. Но, как уже отмечалось выше, в последние 10 лет тяжесть и распространенность патологических нарушений в популяции осетровых заметно сократились, а зарегистрированные очаги регенерации во внутренних органах объясняются известной широкой экологической валентностью и физиологической пластичностью данного семейства рыб. К сказанному можно добавить, что деструктивные явления в организме рыб следует расценивать как функциональное накопление и отдаленное последствие воздействия токсических веществ.
Принципиальное значение имеют данные, полученные нами в последние 10 лет, о распространении особей без патологических нарушений. Этот позитивный факт заслуживает рассмотрения. По степени выживаемости все особи различаются между собой, и в зависимости от условий обитания численность их в популяции флуктуирует. Различают избирательную, сплошную, а для промысловых видов еще и промысловую cмepтность, величина которой зависит от силы воздействия факторов внешней среды. При сплошной cмepтности сила воздействия максимальна и сводит на нет избирательную устойчивость. И только при хроническом влиянии наблюдается избирательная cмepтность, когда погибают малоустойчивые особи. Более стойкие приспосабливаются, выживают, и в этом заключается смысл новой реакции организма, которая формируется в процессе адаптивной модификации [9, 14, 15]. Именно увеличение количества особей без патологических нарушений является фактом стабилизирующего отбора в популяции каспийcких осетровых на современном этапе развития.
Дальнейшие исследования адаптивной модификации каспийских осетровых, которая проявляется в виде новой нормы реакции в новой среде, должны быть направлены на изучение конкретного содержания данной нормы. В этой связи большое значение приобретают генетические исследования. Относительно различных видов рыб, например, известны опубликованные научные данные, свидетельствующие о генетически детерминированных модификациях под влиянием различных химических факторов [16, 17, 18]. Безусловно, что все позитивные изменения будут сопровождаться накоплением отрицательных мутаций вследствие насыщения внешней среды веществами, обладающими мутагенными свойствами [3]. Отрицательные мутации наиболее четко проявляются на ранних стадиях онтогенеза. В частности, у осетровых в предличиночный и личиночный периоды развития отмечено распространение морфологических аномалий в виде искривления хвостовой части туловища, деформации желточного мешка, недоразвития жаберных крышек, грудных плавников, офтальмии, диспропорции размеров различных частей туловища и т. д. [1, 2]. Подобные изменения зарегистрированы нами и на рыбоводных осетровых заводах.
В своей совокупности патологические изменения будут в конечном итоге отрицательно отражаться на формировании общей численности осетровых. На современном этапе исследований банк данных по качественному состоянию каспийских осетровых позволяет разработать методику определения действительного уровня воспроизводства, промвозврата и общей численности каспийских осетровых.
Таким образом, результаты типовых исследований на примере осетровых дают ясное представление о динамике морфофункциональных нарушений. Пик их развития пришелся на 80-е годы, которые оцениваются нами как кризисные для осетровых, а в 90-е годы появились признаки регенерации тканей. Последние 10 лет наблюдений выявили позитивные изменения в организме рыб, отражающие процессы адаптивной модификации, формирования новой нормы реакции. Вероятно, в связи с этим будет возрастать роль стабилизирующего отбора. Дальнейшая перспектива исследований нам видится в изучении самого содержания новой нормы. Так, с помощью биохимических методов возможно установление связи полиморфизма энзимов и других белков с целостностью различных тканей, что позволит обогатить знания о патогенезе. В том же направлении важно изучение механизма регенерации с привлечением данных биохимического анализа крови и в связи с функциональной активностью системы кроветворения.
Целесообразно использовать методы молекулярной биологии, в которой единство структуры и свойств молекул имеет концептуальное значение. Именно конформационные изменения биополимеров принято считать истинно денатурационными, если они приводят к патологическим нарушениям в клетке [8]. В различных стереохимических перестройках макромолекул РНП и ДНП и заложены их специфические, неспецифические, индивидуальные свойства, определяющие весь ход генетически детерминированных процессов и обеспечивающие пластичность популяций, их адаптацию к изменениям во внешней среде.
СПИСОК ЛИТЕРАТУРЫ
- Беляева Е.С. К вопросу о типичности развития предличинок осетровых // Кр. тез. докл. к Всесоюз. совещ. «Осетровое хозяйство водоемов СССР». Астpaxaнь. 1984. С.101-102.
- Горюнова В.Г., Соколова С.А., Сторожук Н.Г., Старцева А.И., Абтахи Р. Эколого-токсикологическая ситуация в низовьях Волги и морфологические аномалии в раннем онтогенезе рыб // Тез. докл. I конгресса ихтиологов России. М.: ВНИРО. 1997. С.147.
- Дубинин Н.П. Мутагены среды и наследственность человека // Генетические последствия загрязнения окружающей среды. М.: Наука. 1977. С.3-20.
- Данилов Р.К. Закономерные процессы патогенеза и регенерации тканей // Сб. тез. «Проблемы экологии в медицине». Астpaxaнь. 1996. С.33-34.
- Земков Г.В., Журавлева Г.Ф., Кокушкина И.В. Физиолого-биохимические показатели осетровых рыб в зависимости от уровня накопления экзотоксикантов во внутренних органах // Влияние антропогенного фактора на экосистему озер: Сб. науч. тр. ГосНИОРХ. Л. 1990. Вып.313. С.186-201.
- Косицкий Г.И., Ревич Г.Г. Креаторная связь и ее роль в организации многоклеточных систем. М.: Наука. 1975. 122 с.
- Кириллов О.И. Процессы клеточного обновления и роста в условиях стресса. М.: Наука. 1977. 177 с.
- Кушнер В.П. Конформационная изменчивость и денатурация биополимеров. Л.: Наука. 1977. 273 с.
- Кошелев В.В. Изменение нормы реакции при адаптации рыб к новым условиям существования // Реакция гидробионтов на загрязнение. М. 1983. С.74-81.
- Одум Ю. Экология. М.: Мир. 1986. Т.1. 328 с.
- Струков А.И. Патологическая анатомия. М.: Медицина. 1971. 600 с.
- Саркисов Д.С. Очерки истории общей патологии. М.: Медицина. 1997. 510 с.
- Саркисов Д.С., Пальцев М.А., Хитров Н.К. Общая патология человека. М.: Медицина. 1995. 269 с.
- Шварц С.С. Эволюционная экология животных // Тр. Ин-та экологии растений и животных. Свердловск: Изд-во АН СССР. 1969. Вып.65. С.12-18.
- Шмальгаузен И.И. Избранные труды. М.: Наука. 1983. 359 с.
- Allusm D., Cope O.B. Insecticides effects in cut-throat trout of nepedted to DDT // Science. 1963. V.142. №3594. P.958-961.
- Kremer V.I., Neveman M.C., Mulwey., Ultsch Y.R. Cyclisis and treb cyclic metabolites in mosquito Aich // Gambik Notbrook. Girard, exposed to mercuric chloridae: Aebosime genotync effects-1959
- Yull W.Y., Tonillin A.D./ DDT in forest streams // Bull. Environ. Contam. And Toxicol. 1970. V.5. №6. P. 479-488.
 Рассматриваются особенности реализации методов развития критического мышления при изучении физики в средней школе.
...
11 10 2026 8:34:36
 Статья в формате PDF
234 KB...
10 10 2026 5:53:43
 Исследованы особенности взаимосвязи увеличения массы и продольных размеров тела и его частей у здоровых новорожденных (535), детей с задержкой внутриутробного развития (938) и 221 детей с отставанием в росте одной из нижних конечностей. Использованы методы антропометрии детей, ультразвуковое исследование плода и оценка психического развития дошкольников. В этих группах обследуемых выявлены хаpaктерные различия динамики продольных размеров тела, отнесенных к его массе. Показано, что церебральный тип конституции появляется у детей при отсутствии диспластической задержки роста тела. Для успешного психического развития дошкольников благоприятны не максимальные, а средние размеры тела детей.
...
09 10 2026 9:51:49
 Статья в формате PDF
116 KB...
08 10 2026 18:15:11
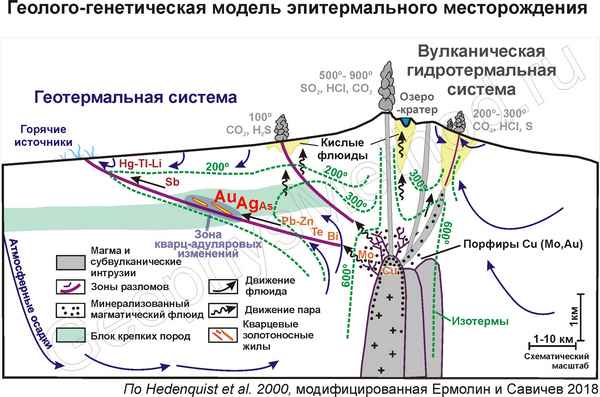 Приведены аномальные структуры геохимических полей (АСГП) по вторичным ореолам рассеяния месторождений и проявлений эптермального золото-серебряного оруденения. Оруденение в регионах связано с венд-раннекембийскими и среднедевонскими вулканогенными образованиями. Показаны различные наборы аномальных значений химических элементов в зонах ядерного концентрирования, транзита элементов и фронтальных зонах концентрирования. Оценен условный потенциал ионизации в зональных конструкциях АСГП, показывающих кислотно – основной потенциал среды минералообразования. Проведен факторный анализ для всех зон АСГП c показом эллипсоидов изменчивости и факторных нагрузок.
...
07 10 2026 8:36:59
 Статья в формате PDF
86 KB...
06 10 2026 9:21:47
 Статья в формате PDF
321 KB...
05 10 2026 17:47:14
 Статья в формате PDF
125 KB...
04 10 2026 18:52:22
 Статья в формате PDF
118 KB...
03 10 2026 21:50:39
 Статья в формате PDF
115 KB...
02 10 2026 20:29:58
 Статья в формате PDF
101 KB...
01 10 2026 8:39:56
 Статья в формате PDF
135 KB...
30 09 2026 21:28:48
 Статья в формате PDF
100 KB...
29 09 2026 17:19:14

 Статья в формате PDF
124 KB...
27 09 2026 13:39:48
 Статья в формате PDF
485 KB...
26 09 2026 10:49:26
 Статья в формате PDF
106 KB...
25 09 2026 18:40:47
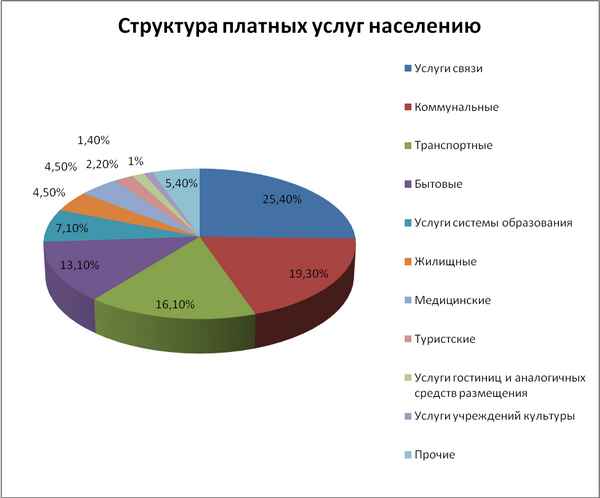 Статья посвящена анализу рынка бытовых услуг Саратовской области. Дается хаpaктеристика объема и структуры потрeбления, места бытовых услуг в системе предпочтений граждан, обеспеченности бытовыми услугами населения городской и сельской местности, анализируется распределение оказывающих бытовые услуги организаций по формам собственности.
...
24 09 2026 6:33:35
 Изучены каталитические свойства неспецифической альдегиддегидрогеназы (КФ 1.2.1.3.), как основного молекулярного маркера альдегиддегидрогеназной системы биотрaнcформации, в поколениях крыс с термической травмой. Активность альдегиддегидрогеназы определяли по регистрации начальной скорости образования НАДН при дегидрогеназном окислении ацетальдегида в качестве субстрата. Показано уменьшение активности фермента через 6 месяцев после ожога. Отмечено снижение активности альдегиддегидрогеназы в I и II поколениях крыс с термической травмой.
...
23 09 2026 15:50:41
 Статья в формате PDF
186 KB...
22 09 2026 11:56:16
 Статья в формате PDF
111 KB...
19 09 2026 12:13:27
Статья в формате PDF 360 KB...
17 09 2026 5:16:41
 Статья в формате PDF
103 KB...
16 09 2026 14:50:20
 Целью исследования явился анализ биоэлектрической активности сердца коренных и пришлых дeвyшек Горного Алтая алтайской и русской национальностей по данным электрокардиографии. Выявлено, что длительность интервала QT снижена во всех исследуемых группах, а интервала ТР и комплекса QRS превышает общепринятые значения. Снижение длительности всех интервалов происходит от алтаек к русским пришлым, что может свидетельствовать о более выраженной симпатикотонии среди последних. Расчетные величины показывают существенное несоответствие фактических значений должным, за исключением синусового ритма, который также снижается от алтаек к русским пришлым. Анализ амплитудно-частотных хаpaктеристик указывает на нарушения, связанные с процессами реполяризации, внутрижелудочковой и внутрипредсердной проводимости, а также гипертрофии этих отделов. О гипертрофии отделов сердца и нарушениях внутрижелудочковой проводимости в виде блокады ножек пучка Гиса свидетельствует также положение электрической оси сердца.
...
15 09 2026 1:14:44
 Статья в формате PDF
114 KB...
14 09 2026 12:35:56
 Статья в формате PDF
139 KB...
13 09 2026 6:49:23
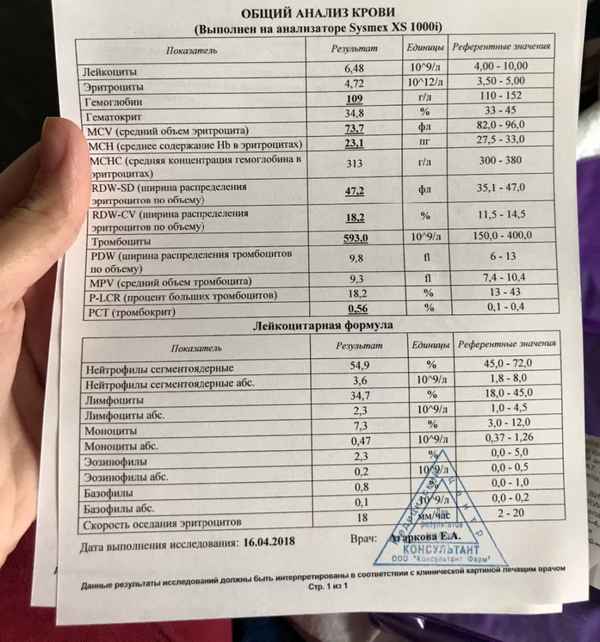 В предложенной работе экспериментально доказано, что при хроническом стрессе, при нарушенном равновесии симпатического и парасимпатического отделов нервной системы, количество клеток периферической крови, изменяясь, не выходит за пределы нормы. Вегетативный баланс хаpaктеризуется средним арифметическим границ нормальных показателей. Общий клинический анализ крови является показателем функционального состояния и может быть предложен как метод, определяющий эффективность проводимого лечения в постстрессорной реабилитации.
...
12 09 2026 16:19:14
 Исследование в биологии включает в себя наблюдение, описание, учебный опыт или эксперимент, сравнение, анализ, систематизацию результатов. Такая самостоятельная учебная деятельность приводит к формированию био-экологического мышления, без которого невозможна реализация биоцентрического принципа в обучении.
...
11 09 2026 5:16:48
 Статья в формате PDF
104 KB...
10 09 2026 13:32:18
 Статья в формате PDF
171 KB...
09 09 2026 15:35:19
 Статья в формате PDF
120 KB...
08 09 2026 2:17:51
 Статья в формате PDF
113 KB...
07 09 2026 16:36:14
 Статья в формате PDF
102 KB...
06 09 2026 7:20:13
 Статья в формате PDF
286 KB...
04 09 2026 18:24:42
 Статья в формате PDF
308 KB...
03 09 2026 1:24:11
 Статья в формате PDF
296 KB...
02 09 2026 23:47:51
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::