ЭКОЛОГИЧЕСКОЕ РЕГУЛИРОВАНИЕ ЧИСЛЕННОСТИ ПОПУЛЯЦИЙ МЕЛКИХ МЛЕКОПИТАЮЩИХ

1 Институт экологии растений и животных УрО РАН На основании многолетних наблюдений за комплексом внешних условий и состоянием популяций мелких млекопитающих количественно оценено распределение влияний внутрипопуляционных и внешних факторов на динамику их численности и структуры. Показано, что основное влияние на демографические процессы полевок на протяжении всего сезона размножения оказывают плотностно-зависимые механизмы регуляции (эндогенные факторы). Экзогенные (хищники, кормовые и погодные) факторы выступают в качестве воздействий, ограничивающих рост населения популяции, и наиболее эффективны в переходные осеннее-зимний и зимне-весенний периоды. Статья в формате PDF 335 KB регулирование численностидинамикаструктурадемографияциклыполевкикормовая базахищникиплотностно-зависимая регуляция 1. Большаков В.Н., Кубанцев Б.С. Пoлoвая структура популяций млекопитающих и ее динамика. – М.: Наука, 1984. – 233 с. 2. Жигальский О.А. Анализ популяционной динамики мелких млекопитающих // Зоол. журн. – 2002. – Т. 81. – № 9. – С. 1078–1106. 3. Жигальский О.А. Структура популяционных циклов рыжей полевки (Myodes glareolus) в центре и на периферии ареала // Известия РАН. Серия биологическая. – 2011. – № 6. – С. 733–746. 4. Жигальский О.А. Сезонная динамика популяции рыжей полевки в Удмуртии // Вестник Удмуртского университета. – 2012. – Вып. 4. – С. 64–70. 5. Ивантер Э.В., Жигальский О.А. Опыт популяционного анализа механизмов динамики численности рыжей полевки (Clethrionomus glareolus) на северном пределе ареала // Зоол. жур. – 2000. – Т. 79. – № 8. – C. 979–989. 6. Карасева Е.В., Телицына А.Ю., Жигальский О.А.. Методы изучения грызунов в полевых условиях. – М.: Изд-во ЛКИ, 2008. – 416 с. 7. Шварц С.С. Экологические закономерности эволюции. – М.: Наука. 1980. – 277 с. 8. Шилов И.А. О механизмах популяционного гомеостаза у животных // Успехи соврем. биол. – 1967. – Т. 64. – Вып. 2(5). – С. 333–351. 9. Krebs C.J. Population cycles revisited // J. Mammal. – 1996. – Vol. 77, № 1. – Р. 8–24. 10. Zhigalsky O.A. Factorial ***ysis of population dynamics in rodents // Polish ecological studies – 1992. – Vol. 18, № 1–2. Quarterly. – P. 3–158.
Динамика популяций мелких млекопитающих формируется под влиянием совокупного действия эндо- и экзогенных факторов и имеет хаpaктер сложных сезонных и многолетних колебаний [2–4, 7–9]. Сезонность размножения определяет дискретность популяционной динамики, а поэтому может рассматриваться как один из основных факторов, вызывающих запаздывание реакции популяции на изменения внешних и внутренних условий [4]. Наличие подобного рода запаздывания, высокий репродуктивный потенциал мелких млекопитающих, плотностно-зависимая внутривидовая конкуренция, влияние хищников, изменения кормовой базы и целый ряд других факторов могут являться причинами возникновения, как популяционных автоколебаний, так и хаотических колебаний.
Несмотря на большое количество работ, посвященных динамике популяций и анализу механизмов формирования ее цикличности, в современной экологии не существует единого мнения о причинах и основных факторах возникновения этого явления [1–5, 7–10]. Поддержание численности популяций и механизмы ее формирования – одна из актуальнейших проблем популяционной экологии.
Цель исследования – выявить циклическую составляющую в многолетней динамике популяций рыжей полевки в центре и на периферии ареала и оценить роль внутрипопуляционных и внешних факторов в формировании ее циклов.
Материал и методы исследования
В основу исследования положены материалы многолетнего изучения популяционной динамики на двух стационарных участках, переданные в наше распоряжение А.Д. Бернштейн, А.В. Хворенковым (удмуртский стационар) и Э.В. Ивантером (карельский стационар). Выбор местоположения стационаров осуществлен в соответствии с задачами изучения географических особенностей цикличности рыжей полевки. Удмуртский стационар расположен в бореальной зоне липово-пихтово-еловых подтаежных лесов (57°20′ с. ш., 52° в. д.), он отнесен к оптимальной для рыжей полевки области в центре ареала. Карельский стационар расположен в бореальной зоне, подзоне среднетаежных лесов – периферия ареала рыжей полевки (61°40′ с. ш., 33°30′ в. д.). На территориях обследованных стационаров рыжая полевка доминирует.
Материал собирался стандартным методом ловушко-линий [6]. Отловы проводили регулярно четыре раза в год (апрель, июнь, август и октябрь). За весь период работы отловлено 26893 мелких млекопитающих, в отловах преобладала европейская рыжая полевка (Myodes (Clethrionomys) glareolus Shreber, 1780) – 70,4 % от общего числа отловленных животных (18936). За весь период отработано более 103000 ловушко-суток. Среди большого числа экзогенных факторов анализировались среднемecячные температуры воздуха, количество осадков, высота снежного покрова и зимние корма (семена липы и ели в баллах от 0 до 5). Для обработки данных использовали методы одномерной и многомерной статистики: спектральный и дисперсионный анализы. Различия считались достоверными на уровне значимости р < 0,05.
Результаты исследования и их обсуждение
При рассмотрении многолетней динамики численности полевок возникает вполне закономерный вопрос – случайны колебания ее численности, или они подчиняются некоторым закономерностям. Для решения этого вопроса проведен спектральный анализ многолетних рядов численности рыжей полевки с двух стационарных географически удаленных участков.
В спектрах рядов численности, обеих популяций выявлен явно выраженный пик спектральной плотности соответствующий периоду от 2 до 5 лет. На спектрограмме обнаружен еще один мощный выброс соответствующий сезонному пику с периодом один год. Поэтому можно считать, что наблюдаемые изменения численности популяций рыжей полевки представляют собой сложный процесс, состоящий из суммы двух колебаний (сезонной и многолетней составляющих). В исследованных популяциях выделены четыре фазы популяционного цикла. Кроме того, обнаружены повторяющиеся переходы из одной фазы в другие, но для каждой популяции хаpaктерна присущая только ей структура переходов. На удмуртском стационаре (центр ареала) популяционный цикл имеет продолжительность 2–4 года, а на карельском стационаре (периферия ареала) длительность популяционного цикла колeблется от 2 до 5 лет.
В удмуртской и карельской популяции, несмотря на постоянно меняющиеся условия каждого конкретного года, во всех случаях происходит переход из фазы «пик» в фазу «депрессия». Динамика численности и структуры населения наблюдаемых популяций более всего напоминает один из типичных сценариев перехода хаотического движения через некоторые промежуточные к стационарному состоянию. При таком хаpaктере динамики всплески хаотического поведения чередуются с участками, на которых происходят почти периодические колебания.
В результате проведенного анализа сценарий развития циклов рыжей полевки можно представить себе следующим образом. Популяционный цикл представляет собой на две качественно различные части. Первая – «популяционный крах» или «детерминированная» часть цикла – переход из фазы «пик» в фазу «депрессия». Этот переход наблюдается в обеих популяциях в разные годы, несмотря на все многообразие условий каждого конкретного из них и местонахождения популяции. Такая ситуация может иметь место только в том случае, если демографические процессы определяются главным образом внутрипопуляционными факторами и слабо зависят от внешних условий.
Вторую часть цикла можно назвать «стохастической», она начинается с устойчивой точки цикла фазы «депрессия». Длительность этой части цикла связана с возможностью популяции увеличивать свою численность, а скорость этого процесса определяется различным соотношением влияния как внешних, так и внутрипопуляционных факторов. Вероятнее всего, определяющими в этой части цикла являются внешние условия (погодные и кормовые факторы, численность хищников, месторасположение популяции в ареале вида и др.). Подобное явления отмечено и для других частей ареала рыжей полевки.
Каким образом можно объяснить феномен цикличности или в общем случае процесс регулирования численности? На рисунке представлена общая схема регулирования численности в системе кормовой ресурс – мелкие млекопитающие – хищники. В данном случае к внешним условиям откосится весь комплекс погодных и климатических факторов (температура, количество осадков, влажность, антропогенные факторы), кормовой ресурс и хищники, а к внутренним внутрипопуляционные гомеостатические плотностно-зависимые механизмы регуляции.
Согласно современным представлениям схему регулирования численности мелких млекопитающих в общем виде можно представить состоящей из следующих основных блоков (рисунок): грызуны, хищники, кормовые ресурсы (растительный покров) и комплекс внешних условий [2–5, 7, 8].
Численность популяций полевок определяет ее плотность и структуру населения, которые в зависимости от количества и качества кормовых ресурсов и численности хищников могут «включать» или «выключать» плотностно-зависимые механизмы изменяющие уровень cмepтности и интенсивность размножения зверьков. Увеличение плотности зверьков на территории приводит к уменьшению густоты растительного покрова и снижению наземной и корневой биомассы растений и если эти воздействия превышают величины допустимого воздействия на растительные сообщества, уменьшается его продуктивность, что в дальнейшем может стать причиной падения численности.
Схема взаимодействия популяций грызунов, хищников и кормовой базы. Примечания: сплошная линия – прямое воздействие; линия из точек – обратные связи; пунктирная линия – взаимодействия на одном трофическом уровне
Известно, что переход биомассы с уровня первичных продуцентов на уровень первичных консументов связан с потерей вещества и энергии. В среднем считается, что лишь 10 % фитомассы и связанной с ней энергии переходит с предыдущего уровня на следующий, остальная энергия и биомасса расходуется на подержание жизнедеятельности и процессы роста и развития. В лесных биоценозах кормовые ресурсы в летний период настолько велики, что изъятие 10 % общей биомассы не могут стать причинной снижения численности полевок. В то время как высокая урожайность семена липы и ели осенью предыдущего года (зимние корма) могут инициировать зимнее размножение и высокую весеннюю численность следующего года [4].
Численность хищников также как и численность полевок формирует свою плотность и структуру популяции. Основой пищевого рациона хищников служат мелкие млекопитающие. Поэтому увеличение плотности и изменение структуры населения хищников приводит к возрастанию потребностей животных в пище, что может приводит к снижению плотность популяций грызунов. Но согласно опубликованным ранее данным хищники не могут являться причиной снижения численности полевок, так как они могут изъять из популяции полевок не более 5–7 % от общей биомассы полевок, не оказывая тем самым существенного влияния на популяцию своих жертв [2].
Заключение
Таким образом, внутрипопуляционные факторы формируют «детерминируемую» часть цикла. Переход этот для обеих популяций осуществляется за один осенне-зимне-весенний период и не влияет на длительность цикла. Длительность «стохастической» части цикла определяется с одной стороны состоянием популяции и ее возможностью увеличить свою численность, а с другой ограничивающими факторами – погодные и кормовые условия, пресс хищников и др., в число которых входит и месторасположение популяции в ареале вида. В центре ареала длительность «стохастической» части цикла составляет 1–3 года. На периферии ареала этот промежуток времени составляет 2–4 года.
Автор выражает благодарность Трушину С.П. за помощь в подготовке статьи.
Работа выполнена при финансовой поддержке программы научных исследований УрО РАН (проект № 12-С-4-1012) и РФФИ (грант № 13-04-00802).
 Статья в формате PDF
344 KB...
20 09 2026 21:31:49
 Статья в формате PDF
92 KB...
19 09 2026 5:25:11
 Статья в формате PDF
115 KB...
18 09 2026 8:22:16
 Статья в формате PDF
283 KB...
17 09 2026 2:56:46
 Статья в формате PDF
793 KB...
16 09 2026 22:29:50
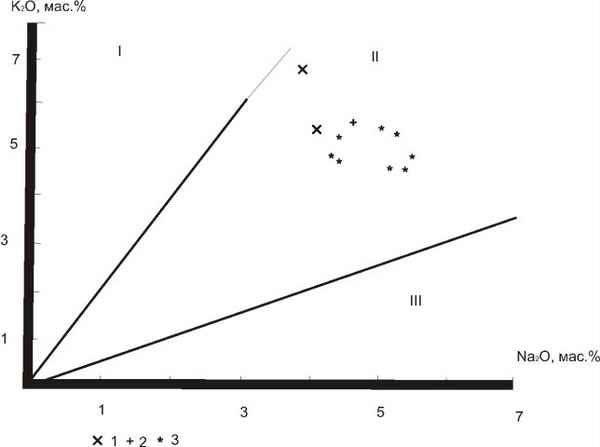 Рассмотрены химические и термодинамические особенности возникновения тетрадного эффекта фpaкционирования редкоземельных элементов в высоко эволюционированных гранитоидах на многих примерах его проявления в отечественной и зарубежной пpaктики. Выявление тетрадного эффекта позволяет боле глубоко понять особенности петрологии развития магматических очагов многих интрузивных комплексов и потенциальные перспективы гранитоидов на редкометалльное и редкоземельное оруденение. Составлена математическая программа расчёта тетрадного эффекта фpaкционирования редкоземельных элементов, прилагаемая в электронном варианте к статье.
...
14 09 2026 11:44:16
 Статья в формате PDF
115 KB...
13 09 2026 13:19:49
 Статья в формате PDF
301 KB...
12 09 2026 20:36:42
 Статья в формате PDF
96 KB...
11 09 2026 16:55:27
 Статья в формате PDF
113 KB...
10 09 2026 8:22:26
 Статья в формате PDF
114 KB...
09 09 2026 1:52:24
 Статья в формате PDF
251 KB...
08 09 2026 1:32:33
 Статья в формате PDF
236 KB...
07 09 2026 13:57:40

 Статья в формате PDF
119 KB...
05 09 2026 15:52:12
 Статья в формате PDF
230 KB...
04 09 2026 19:53:15
 Статья в формате PDF
99 KB...
03 09 2026 6:59:22
 Статья в формате PDF
104 KB...
02 09 2026 5:29:41
 Статья в формате PDF
393 KB...
01 09 2026 19:10:12
 Статья в формате PDF
111 KB...
31 08 2026 21:46:59
 Статья в формате PDF
97 KB...
30 08 2026 12:37:16
 Обсуждается сезонность рождения больных шизофренией. Исследовав 2017 случаев заболевания, авторы отмечают сезонность и гендерные различия в рождении больных шизофренией. Высказывается предположение, что одной из причин сезонных колебаний рождаемости больных, у мужчин, может быть патогенное действие вирусной инфекции на головной мозг плода во втором триместре беременности.
...
29 08 2026 22:20:14
 Статья в формате PDF
565 KB...
28 08 2026 2:51:11
 Статья в формате PDF
99 KB...
27 08 2026 12:17:27
 Статья в формате PDF
310 KB...
25 08 2026 12:27:43
 Статья в формате PDF
113 KB...
24 08 2026 12:58:21
 Статья в формате PDF
96 KB...
23 08 2026 17:42:34
 Проанализированы изменения теплового состояния грунтов при техногенных воздействиях. Выявлено значительное повышение среднегодовой температуры верхних горизонтов криолитозоны и увеличение глубины сезонного протаивания при вырубке леса и удалении напочвенного покрова, вырубке леса на гарях в межаласном типе местности. Количественно оценена динамика среднегодовой температуры грунтов на разнорежимных вырубках, на гарях в зависимости от стадий сукцессионного развития растительности.
...
22 08 2026 2:25:51
 Статья в формате PDF
100 KB...
21 08 2026 4:29:17
 Статья в формате PDF
113 KB...
20 08 2026 11:16:19
Статья в формате PDF 115 KB...
19 08 2026 12:57:57
 Статья в формате PDF
128 KB...
18 08 2026 17:36:37
 Статья в формате PDF
118 KB...
17 08 2026 10:46:33
 Статья в формате PDF
256 KB...
16 08 2026 8:50:25
 Благодаря образованию сплошных посадок во многих районах Белгородской области и повсеместному произрастанию преимущественно на нарушенных местообитаниях, гравилаты могут стать хорошим подспорьем в заготовке трав на корма, особенно в неурожайные засушливые годы. Гравилат городской и гравилат речной имеют следующие хаpaктеристики по питательности кормов: протеин 10,50, 8,31 % соответственно, жир – 2,81, 373 %, редуцирующие сахара – 1,11, 2,39 %, каротин – 37,44, 24,13 мг/кг, витамин Е – 278, 250 мг/кг, витамин С – 352,0, 394,0 мг/кг, витамин А – 18,5, 25,71 мг/кг, основные микроэлементы в достаточно большом объёме. Железа у гравилата городского – 52,2 мг/кг, гравилата речного – 34,72 мг/кг, марганца – 14,53; 6,7 мг/кг соответственно, меди – 2,1; 1,35 мг/кг, цинка – 10,03; 4,7 мг/кг. Кроме этих микроэлементов содержатся другие минеральные вещества в следующих соотношениях: гравилат городской – массовая доля кальция – 0,40 %, фосфора – 0,074 %, магния – 0,15 %, натрия – 0,009 %, калия – 0,57 %, серы – 0,072 %; гравилат речной – кальций – 0,73 %, фосфор – 0,06 %, магний – 0,13 %, натрий – 0,011 %, калий – 0,62 %, сера – 0,08 %.
...
15 08 2026 10:12:46
 Статья в формате PDF
119 KB...
14 08 2026 4:46:43
 Статья в формате PDF
111 KB...
13 08 2026 21:38:15
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
