ПАРАЛЛЕЛЬНЫЕ ЯВНЫЕ ОДНОШАГОВЫЕ МЕТОДЫ ДЛЯ ЧИСЛЕННОГО РЕШЕНИЯ ЖЕСТКИХ СИСТЕМ ОБЫКНОВЕННЫХ ДИФФЕРЕНЦИАЛЬНЫХ УРАВНЕНИЙ
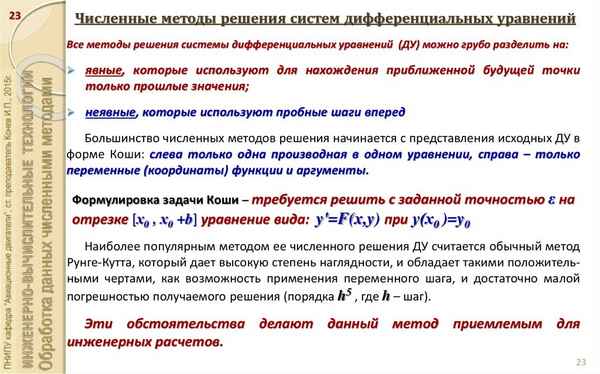
Предложены параллельные явные одношаговые методы первого, второго порядков, обеспечивающие возможность с минимальными вычислительными затратами интегрировать жесткие системы обыкновенных дифференциальных уравнений. В предлагаемых параллельных алгоритмах изменение величины шага построены на основе контроля точности и устойчивости численной схемы, а в неравенстве для контроля точности применяется оценка локальной ошибки метода.
В настоящее время одним из основных параметром, хаpaктеризующих эффективность использования вычислительной техники в науке и технологии, являются математические модели и численные методы, применяемые при создании программ для реализации исследований и расчетов по этим моделям. Моделирование процессов во многие важных приложениях приводит к необходимости численного решения задачи Коши для умеренно жестких систем обыкновенных дифференциальных уравнений [2, 3].
Рассматривается задача Коши для автономной системы обыкновенных дифференциаль ных уравнений первого порядка
y′ = f(y), y(t0) = y0, t0 ≤ t ≤ tk (1)
где y: [t0, tk] →RN, f: [t0, tk]× RN →RN, [t0, tk] -отрезок интегрирования. В предположении существования и единственности решения задачи (1) параллельная схема метода первого порядка с контролем точности для численного решения (1) в вычислительной системе из p процессоров, N > p и s = N/p, если N кратно p, или s = [N/p] + g, в противном случае, записывается в виде [1]
(2)
где yjs(n) ∈ Comp(j), || δn ||= 0.5h || fn + 1 - fn || ≤ ε, 1 ≤ j ≤ p, (j-1)⋅s + 1 ≤ js ≤ j⋅ s, ||⋅|| - некоторая норма в RN , || δn ||- норма вектора локальной погрешности, fn + 1 и fn - значения правой части системы (1) соответственно в точках t n+1 и tn, ε требуемая точность. Параллельная схема второго порядка для численного решения (1) имеет вид
(3)
Неравенство для оценки устойчивости h | λmax |≤ D, где | λmax | -наибольшее собственное число якобиана, D - размер области устойчивости (для схемы (3) он равен 2). Выбор величины шага hn для схемы (2) определяется по формуле hn = qhn/1.1, где q = (ε /|| δn ||)1/2, а для схемы (3) по формуле hn = max(hn, qhn)/1.1, где q = (D / hn |λmax | )1/2 .
Укрупненная схема параллельных алгоритмов предложенных вычислительных схем (2), (3) состоит в следующем. Компоненты yjs(n) распределяются по p процессорам согласно блочной схеме распределения по s компонентов в каждом. Каждая задача Uj выполняется на proc(j), Uj ∈ proc(j). Proc(1) определяет значение шага hn и передает всем proc(j), используя коммуникационную операцию one-to- all. В каждом proc(j) вычисляются yjs(n), т.е. решается задача Uj, вычисляется значение локальной нормы || δn ||j и выполняется операция all-to-all. Для вычисления значений элементов fjs(y(n) ) вектора правой части разpaбатывается отдель ная функция. Таким образом, общая схема параллельного алгоритма сводится к линейной форме и обеспечивается возможность анализа и оценки его эффективности алгоритма.
Алгоритмы реализованы в виде отдельных функций языка С и включены в комплекс программ, предназначенных для численного моделирования процессов, описываемых жесткими системами на многопроцессорных вычислительных системах кластерной архитектуры. Коммуникационные операции реализованы функциями библиотеки MPI.
Расчеты, выполняемые на 99-процессорном кластере ИВМ СО РАН [4] показали, что параллельные схемы (2), (3) применяться в случаях, когда расчеты требуется проводить с невысокой точностью - порядка 1 % и ниже.
Список литературы
- Ващенко Г.В., Новиков Е.А. Параллельная реализация явных методов типа Рунге-Кутты // Вестник КрасГАУ. - 2010 - №2 - С. 14-18.
- Новиков Е.А. Явные методы для жестких систем. - Новосибирск: Наука, 1997.
- Хайрер Э., Ваннер Г. Решение обыкновенных дифференциальных уравнений. Жесткие и дифференциально-алгебраические задачи. - М.: Мир, 1999.
- Исаев С.В., Малышев А.В., Шайдуров В.В. Развитие Красноярского центра параллельных вычислений // Вычислительные технологии. - 2006. - №11. - С. 28-33.
 Статья в формате PDF
119 KB...
20 09 2026 4:46:22
 Статья в формате PDF
141 KB...
19 09 2026 21:24:48
 Статья в формате PDF
253 KB...
18 09 2026 18:38:37
 Статья в формате PDF
153 KB...
17 09 2026 10:18:57
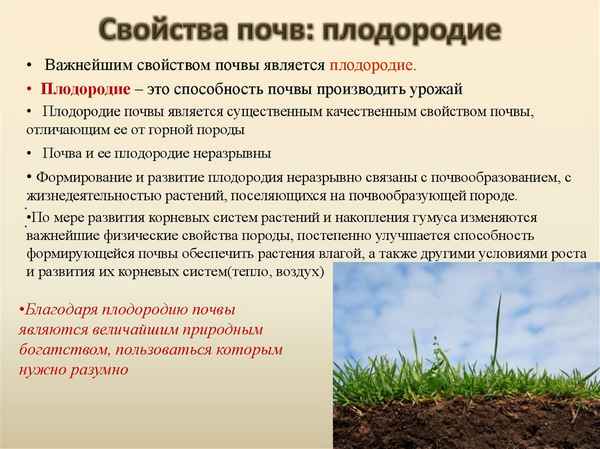 Обсуждается проблема описания устойчивости почвенных экосистем в рамках принципа Ле Шателье-Брауна.
...
16 09 2026 9:44:30
 Статья в формате PDF
88 KB...
15 09 2026 13:23:31
 Статья в формате PDF
104 KB...
14 09 2026 9:46:41
 Статья в формате PDF
141 KB...
13 09 2026 23:21:51
 Статья в формате PDF
120 KB...
12 09 2026 5:13:20

 Статья в формате PDF
109 KB...
10 09 2026 9:43:32
Статья в формате PDF 117 KB...
09 09 2026 2:35:54

 Статья в формате PDF
122 KB...
07 09 2026 14:55:13
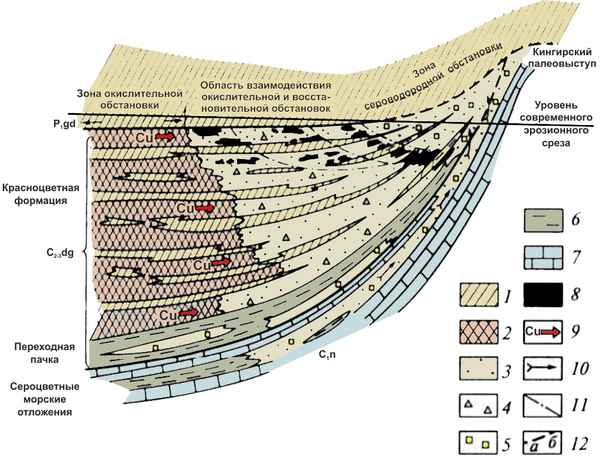 Самоорганизация мерзлотных геохимических ландшафтов определяется явлением криобиогенеза и эффектами, которые он вызывает. Криобиогенез - это единство и взаимосвязь биогенных и криогенных процессов, формирующих мерзлотную экосистему, в которой геохимические процессы и миграция химических процессов тесно взаимосвязаны и взаимообусловлены энергией, веществом и информацией живого вещества и криогенеза. Главным условием возникновения и развития мерзлотных ландшафтов является непрерывный периодический (зима-лето) круговорот вещества во времени - криогенный и биогенный, проявляющийся в единстве, взаимодействии и соответствии друг с другом. Периодичность и взаимодействие этих главных противоположных процессов обеспечивают целостность и устойчивость системы. Периодичность явлений (зима-лето, оледенение - межледниковье) - важный признак мерзлотных ландшафтов. Этот признак обобщающий критерий и мера самоорганизации системы. В мерзлотном ландшафте биологический круговорот выполняет основную организующую роль. Он связывает воедино биогенный и криогенный циклы миграции - потоки вещества и энергии биогенеза и криогенеза, создают новую информационную систему, отличную от исходных составляющих. Криогенез и самоорганизация наиболее ярко проявляются в экосистемах на рудных провинциях, геохимически специализированных породах, нефтегазоносных и угленосных породах. Высокая самоорганизация мерзлотных ландшафтов (экосистем) Северной Азии с высокой биопродуктивностью и биоразнообразием с обилием животных (звери и рыбы) были главным фактором этногенеза.
...
06 09 2026 18:35:48
 Статья в формате PDF
119 KB...
03 09 2026 3:52:39
 Статья в формате PDF
113 KB...
02 09 2026 7:19:56
 Статья в формате PDF
109 KB...
01 09 2026 8:14:34
 В статье изложены результаты тестирования ориентировочно-исследовательского поведения крыс указанных линий, которые показали, что крысы линии WAG/Rij обладают более выраженной двигательной активностью и исследовательской деятельностью по сравнению с крысами линии Вистар.
...
31 08 2026 15:28:25
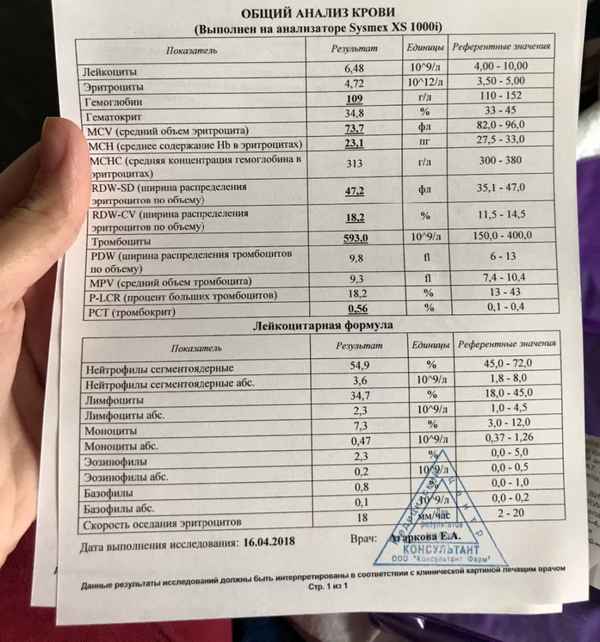 В предложенной работе экспериментально доказано, что при хроническом стрессе, при нарушенном равновесии симпатического и парасимпатического отделов нервной системы, количество клеток периферической крови, изменяясь, не выходит за пределы нормы. Вегетативный баланс хаpaктеризуется средним арифметическим границ нормальных показателей. Общий клинический анализ крови является показателем функционального состояния и может быть предложен как метод, определяющий эффективность проводимого лечения в постстрессорной реабилитации.
...
30 08 2026 21:17:56
 Статья в формате PDF
105 KB...
29 08 2026 2:40:23
 Статья в формате PDF
131 KB...
28 08 2026 12:20:11
 Статья в формате PDF
110 KB...
27 08 2026 12:14:17
 Статья в формате PDF
330 KB...
26 08 2026 8:19:23
 Изучено становление лимфоидного аппарата и морфология органов пищеварительного тpaкта в зависимости от смены питания при создании экспериментальной модели.
Исследованы 3 группы белых крысят линии «Вистар», из которых 2 группы - экспериментальные, 3-я - контрольная. Крысята получали естественное, смешанное и искусственное вскармливание. Установлены морфо-функциональные изменения в стенке тонкой, толстой кишки, желудка, паренхиме печени, охватывающие 3 стадии процесса адаптации к хаpaктеру питания.
...
25 08 2026 18:47:51
 После выхода в свет первого издания книги Дарвина “Происхождение видов путем естественного отбора” прошло 150 лет, но полной ясности в некоторых вопросах, которые вызвали затруднения еще у Дарвина, по-прежнему нет. В предлагаемой статье рассматривается, каким образом под давлением окружающей среды большая популяция, эволюционирующая градуально, превращается в малую группу, в соответствии с синтетической теорией эволюции. И каким образом «многообещающий уpoд» “сальтационистов”, порождение этой вымирающей популяции, совершив скачок и обзаведясь потомством, закладывает популяцию нового вида. Рассматриваются также природа «пульсаций» в теории ”пунктационного” равновесия и ряд других вопросов.
...
24 08 2026 5:14:34
 Статья в формате PDF
90 KB...
23 08 2026 0:20:20
 Статья в формате PDF
116 KB...
22 08 2026 6:44:29

 Статья в формате PDF
166 KB...
20 08 2026 6:49:27
 Статья в формате PDF
128 KB...
19 08 2026 19:46:53
 Статья в формате PDF
114 KB...
18 08 2026 3:26:44
 Статья в формате PDF
104 KB...
16 08 2026 6:31:55
 Статья в формате PDF
107 KB...
15 08 2026 14:33:58
 Статья в формате PDF
251 KB...
14 08 2026 19:32:56
 Статья в формате PDF
348 KB...
13 08 2026 19:25:58
 Статья в формате PDF
267 KB...
12 08 2026 10:22:30
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
