СРАВНИТЕЛЬНЫЙ АНАЛИЗ ВТОРИЧНЫХ СТРУКТУР ГЛЮКОАМИЛАЗ ИЗ ASPERGILLUS AWAMORI И SACCHAROMYCES CEREVISIAE
Исследование свойств глюкоамилаз различного происхождения приобретает особую значимость в связи с применением их в различных отраслях промышленности в роли биокатализаторов. Поиск путей регулирования биокаталитической активности ферментов неразрывно связан с расшифровкой закономерностей и молекулярного механизма катализа реакции гидролиза субстрата. Для решения данной задачи, наряду с определением функциональных свойств энзимов, необходимо проведение их структурного анализа.
Ранее нами были проведены исследования по установлению аминокислотного состава и осуществлен сравнительный анализ первичных структур глюкоамилаз из Aspergillus awamori X100 и Saccharomyces cerevisiae ЛВ-7 [2, 3]. Определение типов и относительного количества элементов вторичной структуры является следующим этапом изучения прострaнcтвенной организации белковой молекулы. В настоящее время существует большое количество предсказательных методов, позволяющих априорно на основе анализа аминокислотных последовательностей прогнозировать итог процесса свертывания полипептидной цепи в глобулу [1, 6, 7]. Однако, анализ данных литературы показал, что с помощью имеющихся методов можно предсказывать правильную вторичную структуру лишь для двух третей всех остатков белка [1, 4, 6, 7]. Значительная погрешность расчетов и их сложность обусловливают целесообразность проведения прогнозирования в тех случаях, когда исследование данного уровня иерархии белковой молекулы нельзя осуществить иным, более корректным способом.
Регистрация спектров поглощения в инфpaкрасной области является одним из самых чувствительных методов изучения особенностей вторичной структуры белка.
С помощью метода инфpaкрасной спектроскопии (ИКС) нами было осуществлено сравнение вторичных структур глюкоамилаз из Aspergillus awamori X100 и Saccharomyces cerevisiae ЛВ-7. Измерение величин светопропускания белковых образцов проводили на многофункциональном ИК-спектрофотометре SPECORD М-80 (Германия) в диапазоне 4000-400 см-1. Обработку серии спектров проводили с учетом параметров всех реально существующих полос поглощения и их анализа.
Точность полученных данных контролировали как по средним квадратичным отклонениям, так и непосредственно по разности между спектрами, которая выводилась на график вместе с экспериментальными и модельными спектрами и полученными индивидуальными пиками.
Анализ ИК-спектров показал наличие полос поглощения амид I (1630-1660 см-1) и амид II (1520-1550 см-1), отличающихся для изучаемых ферментов лишь интенсивностью. Полоса амид I, обусловленная растяжением связи в карбонильной группе, указывает на наличие в молекулах глюкоамилаз различного происхождения структур с водородными связями и на присутствие неупорядоченных участков. Полоса амид II свидетельствует об одинаковом положении во вторичной структуре ферментов α-спиралей и β-структур. Колебания, порождающие ее, связаны с растяжением пептидных и деформацией водородных связей. Наличие пиков поглощения при 2860 и 2780 см-1 соответствуют симметричным колебаниям метильных групп. На осуществление асимметричных колебаний карбоксильных групп указывает полоса поглощения при 2520 см-1, а ряд пиков в области 1720-1872 см-1 обусловлен колебаниями карбонильных групп в концевых ассоциированных СООН-группах. Кроме того, слабо проявляются полосы поглощения при 3373-3254 см-1 , связанные с растяжением NH-связей. Пик в области 1000 см-1 определяется наличием в структуре фенилаланина, гистидина и триптофана монозамещенного ароматического кольца.
Таблица 1. Параметры полос амид I и амид II для полипептидов и белков
|
Конформация |
Амид I |
Амид II |
||
|
Частота, см-1 |
Коэффициент экстинкции, моль-1см-1 |
Частота, см-1 |
Коэффициент экстинкции, моль-1см-1 |
|
|
α-спирали |
1644-1649 |
750 |
1548-1553 |
340 |
|
β-структура |
1615-1623 1691-1699 |
980 180 |
1530-1535 1563 |
340 100 |
|
Неупорядоченная структура |
1650-1654 |
320 |
1546-1553 |
210 |
Анализ результатов, представленных в табл. 2, показал, что соотношение упорядоченных структур и нерегулярных участков в молекулах глюкоамилаз из Aspergillus awamori X100 и Saccharomyces cerevisiae ЛВ-7 статистически не отличаются друг от друга.
Таблица 2. Содержание элементов вторичной структуры в молекулах глюкоамилаз из Aspergillus awamori X100 и Saccharomyces cerevisiae ЛВ-7
|
Конформация |
Глюкоамилаза из Aspergillus awamori |
Глюкоамилаза из Saccharomyces cerevisiae |
||||
|
ν, см-1 |
Т, % |
% |
ν, см-1 |
Т, % |
% |
|
|
α-спирали |
1646 |
34 |
24,4 |
1646 |
56 |
24,1 |
|
β-структура |
1620 |
32 |
18,3 |
1620 |
60 |
18,8 |
|
Неупорядоченные участки |
1652 |
34 |
57,2 |
1652 |
59 |
57,1 |
Из данных литературы следует, что в глобулярных белках, трехмерные структуры которых определены методом рентгено-структурного анализа, обычно около 60 % остатков аминокислот участвуют в формировании вторичной структуры [1, 4-6]. Показано, что содержание α-спиралей в среднем составляет 35 %, β-структур - 15 %, реверсивных поворотов - 20-25 %. В связи с тем, что с помощью метода ИКС не удается определить количество изгибов полипептидной цепи, в таблице 2 представлены результаты расчета α-спиралей, β-слоев и нерегулярных участков. Так как α-спираль является наиболее часто встречающимся в белках типом вторичной структуры, можно сделать предположение о ее высокой конформационной стабильности. С этим хорошо согласуется информация о расположении α-спирали в центре разрешенной области на карте Рамачандрана, а также тот факт, что диполи ее водородных связей имеют линейное расположение, отвечающее минимуму энергии. Кроме того, радиус спирали благоприятствует дисперсионному притяжению между остатками, расположенными по разные стороны от оси спирали [6, 7].
Таким образом, на основании результатов наших исследований установлено, что в состав вторичной структуры молекул глюкоамилаз плесневого и дрожжевого происхождения входят все основные элементы: α-спирали, β-слои и неупорядоченные фрагменты. При этом β-структура анализируемых ферментов хаpaктеризуется наличием антипараллельных цепей. Выявлено, что заниженное по сравнению со среднестатистическим содержание α-спиралей компенсируется за счет увеличения количества β-слоев.
Список литературы
- Кантор Ч. Биофизическая химия. - М.: Мир, 1984. - Т. 1. - 336 с.
- Кожокина О.М., Ковалева Т.А. // Фундаментальные исследования. - 2009. - № 8. - С. 19.
- Кожокина О.М., Ковалева Т.А. // Успехи современного естествознания. - 2010. - № 4. - С. 19.
- Попов Е.М. Структурно-функциональная организация белков. - М.: Наука, 1992. - 358 с.
- Степанов В.М. Молекулярная биология. Структура и функции белков. - М.: Высш. шк., 1996. - 335 с.
- Шерман С.А. Конформационный анализ и установление прострaнcтвенной структуры белковых молекул. - Минск: Наука и техника, 1989. - 240 с.
- Шульц Г. Принципы структурной организации белков. - М.: Мир, 1982. - 360 с.
 Статья в формате PDF
300 KB...
11 10 2026 20:44:41
 Статья в формате PDF
88 KB...
09 10 2026 5:19:33

 Статья в формате PDF
142 KB...
07 10 2026 13:33:34
 Статья в формате PDF
120 KB...
06 10 2026 22:58:23
 Статья в формате PDF
170 KB...
05 10 2026 10:30:21

 Статья в формате PDF
300 KB...
03 10 2026 12:23:10
 Статья в формате PDF
154 KB...
02 10 2026 4:52:26
 Статья в формате PDF
107 KB...
01 10 2026 4:12:29
 Статья в формате PDF
90 KB...
30 09 2026 16:52:28
 Статья в формате PDF
114 KB...
29 09 2026 3:45:44
 Статья в формате PDF
117 KB...
28 09 2026 22:56:14
 Статья в формате PDF
579 KB...
27 09 2026 8:41:43
 Статья в формате PDF
94 KB...
26 09 2026 8:43:49
 Статья в формате PDF
326 KB...
25 09 2026 20:49:54
Важнейшим фактором поддержания селенового статуса организма является феномен эндогенного регулирования, который проявляется как в здоровом организме, так и при различных заболеваниях. Клинические исследования гинекологических больных с гнойно-воспалительными заболеваниями позволили установить, что снижение иммунной защиты организма часто сопровождается снижением уровня селена в сыворотке крови. Обследовано 46 больных (18-37 лет). Бактериологическое типирование подтвердило присутствие: Chlamidia trachomonatis; Ureaplasma urealiticum; St. epidermidis; грам (-) флоры; грам (+) флоры; смешанной флоры; E. Colli; дрожжевых клеток; трихомонад. Интервал концентрации селена в сыворотке крови составил 32,0-89,5мкг/л. Средний показатель 64,8 ± 6,3 мкг/л (при норме 115-120 мкг/л). Показатель уровня селена в сыворотке крови доноров г.Пензы составил 81,0 ± 11,7 мкг/л. Была проведена оценка влияния селенодефицита на течение и прогноз эндотоксикоза. Таким образом, авторегулирование антиоксидантного гомеостаза в организме можно рассматривать как функцию иммунитета, а воздействие фармакологических препаратов как один из методов регулирования селенового статуса населения. ...
24 09 2026 21:48:41
 Статья в формате PDF
117 KB...
23 09 2026 16:35:19
 Статья в формате PDF
140 KB...
22 09 2026 19:57:19
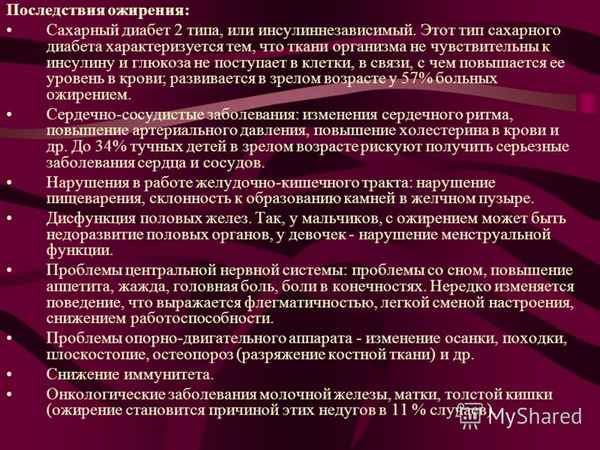
 За 2011 год в Республиканском Центре здоровья для детей г. Чебоксары проведено обследование условно здоровых детей и подростков в возрасте 5–17 лет с помощью биоимпедансного анализатора состава тела АВС-01 «МЕДАСС» (n = 2419). Целью исследования работы явились оценка хаpaктера направленности питания, уровня физической подготовленности, физического развития. Были проанализированы следующие показатели: жировая масса (ЖМ), активно-клеточная масса (АКМ), доля активно-клеточной массы (доля АКМ), скелетно-мышечная масса (СММ). Выявленные нарушения в виде избытка ЖМ у 39,0 % обследованных свидетельствуют о риске развития ожирения, снижение белкового компонента питания у 28,5 % и уровня двигательной активности у 21,0 % обследованных свидетельствуют о нерациональности питания и риске развития хронических неинфекционных заболеваний, снижения репродуктивной функции.
...
19 09 2026 16:42:16
 Статья в формате PDF
466 KB...
18 09 2026 13:41:16
 Статья в формате PDF
111 KB...
17 09 2026 19:17:30
 Статья в формате PDF
132 KB...
16 09 2026 21:57:47
 Статья в формате PDF
103 KB...
15 09 2026 9:52:32
 Статья в формате PDF
117 KB...
14 09 2026 5:36:46

 Статья в формате PDF
342 KB...
12 09 2026 23:38:55
 Приведены петрологические данные и флюидный режим посткинематических гранитоидов поздепермско-раннетриасового калбинского комплекса Калба-Нарымской минерагенической зоны Казахстана и Алтая. Гранитоиды по петро-геохимическим параметрам близки анорогенному А-типу. В генерации интрузий и дайковых образований выявлено мантийно-коровое взаимодействие. Расплавы формировались в процессе плавления корового материала типа гранатового амфиболита под воздействием базальтоидных мантийных магм. По соотношениям изотопов стронция и неодима граниты Борисовского массива тяготеют к источнику мантии типа EM II. В долго живущий глубинный очаг происходил подток мантийных трaнcмагматических флюидов, имевших более восстановленный хаpaктер и обогащённых рядом летучих компонентов: углекислотой, фтором, бором, фосфором. Оптимальные параметры флюидного режима создавали благоприятные условия для формирования промышленного оруденения тантала, ниобия, лития, олова, молибдена, вольфрама в пегматитах, апогранитах, грейзенах и жилах.
...
10 09 2026 4:45:35
 Статья в формате PDF
116 KB...
09 09 2026 11:32:22
 Статья в формате PDF
122 KB...
08 09 2026 18:32:31
 Предложен новый подход к построению педагогической системы учителя. Выделена ее основная цель: формирование навыка понимания. Предложен путь ее реализации, включающий согласование целей обучения, разработку новой программы и новых форм и методов обучения. Выявлены некоторые трудности обучения, затрудняющие формирование навыка понимания.
...
07 09 2026 5:29:32
 Статья в формате PDF
266 KB...
06 09 2026 21:12:27
 Статья в формате PDF
130 KB...
05 09 2026 3:17:28
 Статья в формате PDF
118 KB...
04 09 2026 12:19:15
 Вовлечение серой лесной почвы в сельскохозяйственное производство в течение 26 лет приводит к формированию специфических свойств, которые обусловлены преобразованием микроагрегированности почв. Активность этого процесса зависит от типа агрогенной нагрузки. Так механическое воздействие на серую лесную почву в результате ежегодной отвальной вспашки на 20–22 см вызывает изменение коэффициента полидисперсности и фактора дисперсности в слое 30–40 см. Применение ежегодной безотвальной обработки на глубину 6–8 см не оказывает существенного влияние на микроагрегированность почвы, что не приводит к формированию плужной подошвы.
...
03 09 2026 14:29:30
 Статья в формате PDF
233 KB...
02 09 2026 8:53:11
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::