МАКРОМИКРОМОРФОЛОГИЧЕСКАЯ ХАРАКТЕРИСТИКА ОСОБЕННОСТЕЙ ВЕГЕТАТИВНОГО ОТДЕЛА НЕРВНОЙ СИСТЕМЫ ОБЛАСТИ ТАЗА ПТИЦ
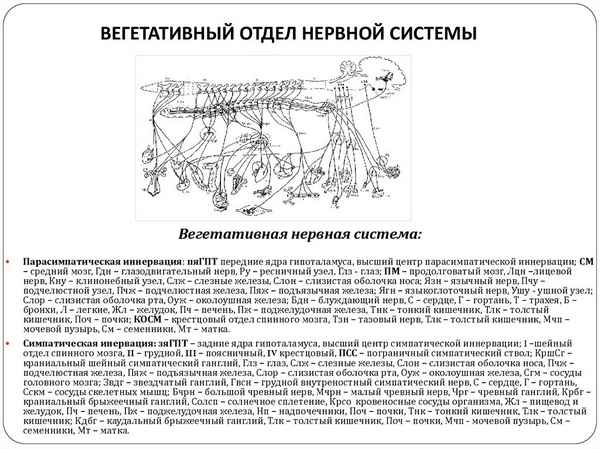
Целью исследования являлось изучение макромикроморфологических особенностей симпатических стволов и их висцеральных ветвей в области таза у 13 видов птиц из отрядов куро-, гусе-, соколо- и совообразные.
В силу того, что тазовый пояс птиц, тесно прилежащий к последним грудным, поясничным, крестцовым и хвостовым позвонкам, вместе с последними рёбрами и каудальной частью гpyдины участвуют в образовании единой обширной полости тела, которую у птиц пpaктически невозможно разграничить на грудной, брюшной и тазовый отделы, органы, расположенные под тазовыми костями, мы относим к органам тазовой области.
Источниками иннервации органов области таза птиц служат вегетативные сплетения, образующиеся за счет внутренностных нервов, отходящих от симпатических стволов, ветвей брюшноаортального сплетения и симпатических нервов, содержащих в своём составе парасимпатические волокна. Паравертебральные симпатические стволы области туловища у изученных видов птиц парные и непрерывные.
Грудная часть симпатического ствола располагается дорсально от лёгких и проходит по латеральной поверхности тел грудных позвонков. На протяжении всего грудного отдела симпатического ствола ганглии соединяются между собой дорсальными и вентральными межганглионарными ветвями, которые петлеобразно охватывают шейку соответствующих ребер. Ганглии грудного симпатического ствола плотно слиты со спинальными ганглиями без макроскопически видимых соединительных ветвей. От нижних полюсов грудных симпатичнских ганглиев и вентральных межганглионарных ветвей, начиная у гусеобразных с Th2 по Th4 и с Th3 по Th4 у куро- соколо- и совообразных сегментов отходят висцеральные ветви в вентрокаудальном направлении к корню чревной артерии. Они формируют ствол большого внутренностного нерва, который вступает в краниальный полюс внутренностного симпатического ганглия.
Висцеральные ветви, отходящие от Th5 и Th7 грудных симпатических ганглиев у гусе, соколо- и совообразных и от Th4-Th5 у курообразных, соединяясь, образуют средний внутренностный нерв, идущий в дорсальную часть внутренностного ганглия одноименного нерва. От большого и среднего внутренностных ганглиев в вентрокаудальном направлении отходят 2-3 нервные ветви к чревному ганглию.
Висцеральные ветви, в количестве 2-5, отходящие от последних двух-трёх грудных и первого поясничного симпатических ганглиев формируют ствол внутренностного нерва общего брыжеечного сплетения. Этот ствол в своём составе имеет от 2 до 5 небольших внутренностных ганглиев треугольной формы и вступает в узловой компонент общего брыжеечного сплетения, который представлен надпочечным, яичниковым (семенниковыми) и общим брыжеечным ганглиями. При концентрированном типе ганглии общего брыжеечного сплетения (у гусеобразных), соединяясь между собой, образуют ганглиозную пластинку подковообразной формы. От ветвей и ганглиев общего брыжеечного сплетения отходят нервы к желудочнодвенадцатиперстной и поджелудочнодвенадцатиперстной частям чревного сплетения, образуя краниальный отдел межбрыжеечного тpaкта.
Поясничная часть симпатического ствола является каудальным продолжением его грудной части. Он проходит по латеровентральному краю пояснично-крестцовой кости, располагаясь медиодорсально от почек под вентральными ветвями спинальных нервов поясничного сплетения.
Двойные межганглионарные связи имеют место между соседними ганглиями L1-L2 у индейки, цесарки, канюка мохноногого и на уровне сегментов L3-L4 у тетерева, где дорсальные ветви в 1,5 раза толще вентральных.
Взаимосвязи поясничных симпатических ганглиев с вентральными ветвями соответствующих спинальных нервов осуществляются у курообразных за счет их слияния, а у гусе-, соколо- и совообразных с помощью сегментарных соединительных ветвей, направленных латеродорсально или дорсокаудально.
Крестцовая часть симпатического ствола проходит по латеральной (курообразные, лебедь), вентральной (гусиные) или по латеровентральной поверхности пояснично-крестцовой кости (утки, соколо-, совообразные).
Крестцовые симпатические ганглии имеют овальную или треугольную форму и по отношению к соответствующим межпозвоночным отверстиям располагаются каудально. Двойные межганглионарные связи иногда имеют место между ганглиями у утки домашней и канюка мохноногого на уровне сегментов S4-S5, где вентрально проходящая ветвь в 1,5 раза крупнее дорсальной.
Для крестцового отдела симпатического ствола хаpaктерно проявление концентрации симпатических ганглиев со слабо или четко выраженной перетяжкой между слившимися ганглиями. Концентрация сопровождается изменением формы, размеров и сегментарного расположения ганглиев.
Взаимосвязи крестцовых симпатических ганглиев с вентральными ветвями соответствующих спинальных нервов осуществляются с помощью соединительных ветвей, длина которых зависит от топографии симпатического ствола. Их соединительные ветви или короткие и толстые (курообразные, лебедь, утка), которые вблизи мест слияния с вентральными ветвями нередко вилкообразно раздваиваются или длинные и нередко двойные (гусь домашний и дикий, соколо- и совообразные).
Полученные результаты позволяют нам выделить поясничные, крестцовые и хвостовые внутренностные нервы, которые участвуют в формировании тазового сплетения. Первые один-два поясничных внутренностных нерва направляются вентрокраниально к ветвям общего брыжеечного сплетения, почечноаортальному ганглию и к стволу кишечного нерва. Последний поясничный и все крестцовые внутренностные нервы проходят вентрально или вентрокаудально, формируя срединнокрестцовое артериальное и почечное сплетения.
Хвостовая часть симпатического ствола располагается на латеровентральной поверхности хвостовых позвонков, приросших к сложной пояснично-крестцовой кости, а в области свободнолежащих хвостовых сегментов - на их вентральной поверхности. Начиная с первого хвостового сегмента у соколо- и совообразных, с шестого - у куро- и гусеобразных и с восьмого - у лебедя, оба симпатических ствола сближаются и на уровне Со5-Со6 (соколо-и совообразные) или Со9-Со11 (куро- и гусеобразные) объединяются в общий ствол. На месте их соединения находится непарный хвостовой ганглий.
Хвостовые симпатические ганглии с вентральными ветвями спинальных нервов или плотно сливаются, или соединяются при помощи микроскопически видимых соединительных ветвей, как это имеет место во всех сегментах у соколо- и совообразных, или на уровне Col-Со3 (лебедь, утка домашняя), Со1-Со4 (гусь домашний), Со8-Со11 (куро- и гусеобразные).
Хвостовые внутренностные нервы участвуют в формировании почечного и каудального прямокишечного сплетений, срамного и кишечного нервов.
Первые три-четыре хвостовые внутренностные нервы, в отличие от пояснично-крестцовых, очень длинные. Они проходят вентрокаудально и, располагаясь между почками и телом пояснично-крестцовой кости, отдают одну-две ветви в почечное сплетение. На уровне первых свободнолежащих хвостовых сегментов под срединной хвостовой артерией право- и левосторонние ветви соединяются между собой, формируя два-три нервных ствола, направляющихся к ганглиям клоакального сплетения.
Хвостовые внутренностные нервы на уровне сегментов Со4-Со5 (соколо- и совообразные) или Со5-Со7 (куро-, гусеобразные) соединяясь, образуют каудальное прямокишечное сплетение, которое располагается вдоль одноименной артерии. Упрошенное строение этого сплетения объясняется слабым развитием каудальной прямокишечной артерии и небольшой областью распространения ее ветвей.
Ветви каудального прямокишечного сплетения участвуют в формировании клоакального сплетения и в иннервации прямой кишки.
Хвостовые внутренностные нервы, отходящие от симпатических ганглиев Со5-Со6 (соколо-, совообразные) и Со8-Со10 (куро-, гусеобразные), соединяясь между собой, образуют срамной нерв, который участвует в формировании клоакального сплетения.
Клоакальное сплетение, как составная каудальная часть тазового сплетения у птиц хорошо выражено и располагается дорсальнее клоаки. Учитывая, что в его образовании участвуют ветви хвостовых внутренностных и тазовых нервов, то в его составе проходят как симпатические, так и парасимпатические нервные волокна. В клоакальном сплетении наряду с большим числом (5-8) мелких ганглиев имеется крупный, прямоугольно-вытянутой формы клоакальный ганглий. К дорсальному полюсу клоакального ганглия подходят нервные ветви от каудального прямокишечного, срамного и тазового нервов.
Клоакальное сплетение служит основным источником иннервации каудальных отделов мочеточников, яйцевода (семяпроводов), фабрициевой сумки, клоаки и aнycа.
Интенсивность иннервации клоаки у птиц мы связываем с большим разнообразием ее функций (непосредственное отношение к органам пищеварения, мочеотделения и размножения).
Кишечный нерв - это специфическое образование, хаpaктерное для птиц. У изученных видов птиц кишечный нерв непарный, он отходит одной-двумя ветвями от краниального полюса клоакального ганглия и, направляясь краниально, проходит в брыжейке над кишечной трубкой до восходящей части двенадцатиперстной кишки, где соединяется с ветвями поджелудочнодвенадцатипер-стного сплетения.
В соответствии с топографией мы кишечный нерв подразделяет на толсто- и тонкокишечную части, которые в своем составе имеют 13-20 ганглиев.
Ганглии по ходу кишечного нерва распределяются неравномерно. У гусеобразных в области отхождения артериальных ветвей для тощей кишки они концентрируются.
От ствола кишечного нерва и его ганглиев отходят ветви к кишечной стенке, в основном, под прямым углом в межсосудистых промежутках. Подойдя к кишечной стенке, они делятся на две ветви, которые соединяясь с соседними веточками, образуют экстрамуральное нервное сплетение.
В начальной части кишечного нерва находится крупный предклоакальный ганглий, который двойной межганглионарной ветвью соединяется с клоакальным ганглием. В предклоакальный ганглий входят ветви от первых 3-4 хвостовых внутренностных нервов и каудального прямокишечного сплетения.
Тонкокишечная часть кишечного нерва имеет вентрокраниальное направление и проходит в брыжейке от подвздошной до восходящей части двенадцатиперстной кишки, где на уровне первой артерии тощей кишки делится на конечные ветви, вступающие в общее брыжеечное и поджелудочнодвенадцатиперстное сплетения. Непосредственных соединений между ветвями кишечного и блуждающего нервов мы не наблюдали.
У птиц общий вaгинальный ствол в области каудальной части железистого желудка делится на дорсальную и вентральную ветви, которые проходят по соответствующим краям мышечного желудка, формирую крупнопетлистое подсерозное сплетение. В своих исследованиях мы подтверждаем данные Э.А. Солонеко (1968), Р.Х. Шакирова (1968), И.В. Прибытова (2007), о том, что блуждающие нервы у птиц оканчиваются на мышечном отделе желудка, а не иннервируют весь кишечник (Э.М. Левицкий, 1969; Г.А. Благодатских, 1971 и др.).
Тазовые нервы у птиц относятся к смешанным, содержащим парасимпатические нервные волокна. Тазовые нервы парные и формируются двумя-тремя ветвями, отходящими от первых спинальных нервов, участвующих в образовании хвостового сплетения. Их первая ветвь отходит на уровне Со5-Со6 и, соединяясь с последующими ветвями, формирует ствол тазового нерва, который продолжается вентрокаудально вдоль мочеточника до клоаки. По ходу, как от ствола, так и от его ганглиев отходят тонкие веточки к мочеточнику, яйцепроводу (семяпроводу), фабрициевой сумке, клоаке, aнycу, а также к срамному нерву и клоакальному сплетению.
На основании анализа и обобщения полученных результатов мы приходим к убеждению, что наличие многочисленных морфологических связей между клоакальным сплетением, внутренностными, кишечным и тазовым нервами обеспечивает у птиц теснейшие морфофункциональные взаимоотношения всего органокомплекса грудобрюшной и тазовой полостей.
 Для исследования вариаций параметров живых существ, обитающих в биосфере в разных широтных регионах, в частности экваториальных, построена модель экваториального электроджета, основанная на численном решении дифференциальных уравнений второй степени для потенциала, вызванного прострaнcтвенным зарядом.
...
31 10 2026 22:13:47
 Статья в формате PDF
121 KB...
30 10 2026 19:34:14
 Статья в формате PDF
104 KB...
29 10 2026 5:38:39
 Статья в формате PDF
164 KB...
28 10 2026 10:24:19
 Процессы разрушения твердой среды рассматриваются в связи с формированием и действием сейсмического излучения. Основой анализа является представление о сейсмическом излучении как о передаче в твердой среде механического импульса.
...
27 10 2026 4:11:38
 Статья в формате PDF
110 KB...
26 10 2026 15:52:44
 Статья в формате PDF
101 KB...
25 10 2026 0:32:59
 Статья в формате PDF
101 KB...
24 10 2026 21:36:30
 Статья в формате PDF
344 KB...
23 10 2026 10:12:12

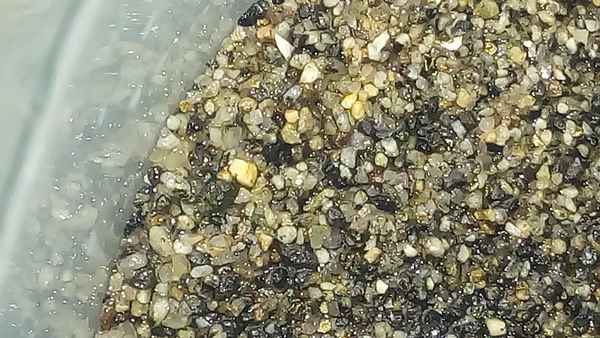 Рассматривается возможность извлечения мелкого золота из золотосодержащего речного песка при проведении очистки фарватера р. Енисей (Тува) земснарядом с производительностью 250 м³/ час по исходным пескам, и убедительно показана целесообразность и экономическая выгода этого.
...
21 10 2026 18:34:41
 Статья в формате PDF
262 KB...
19 10 2026 13:38:15
 Статья в формате PDF
155 KB...
18 10 2026 4:13:55
 Статья в формате PDF
122 KB...
17 10 2026 7:19:26
 Статья в формате PDF
262 KB...
16 10 2026 21:45:29
 В работе представлены результаты исследования влияния высокоинтенсивных физических факторов электрического поля коронного разряда (ЭПКР), создаваемого установкой «Экран», и некогерентных световых импульсов (НСИ), создаваемых установкой «Стимул» [1, 2], на семена овощных культур, с целью повышения урожайности.
По результатам исследования выявлено, что все использованные в эксперименте режимы высокоинтенсивного физического воздействия на семена овощных культур оказывают стимулирующий биологический эффект при оценке урожайности. Определено, что наиболее эффективными режимами ЭПКР для повышения урожайности овощных культур являются режимы с напряженностью электрического поля 3,5 кВ/см и 5 кВ/см. Выявлено, что наиболее эффективными режимами НСИ для повышения урожайности овощных культур является режим с запасенной суммарной электрической энергией импульсного источника энерго-питания 80 кДж. Показано, что при воздействии на посадочный материал картофеля НСИ с запасенной суммарной электрической энергией 40 кДж наблюдается стимулирование роста, развития, повышение всхожести и сокращение вегетационного периода картофеля. Кроме того, данное физическое воздействие вызывает повышение качества урожая картофеля, т.к. вес и количество крупных и средних клубней в опытной группе значительно больше, чем в контрольной.
...
15 10 2026 23:33:34
 Способ глазомерного учета выхода сортиментов из деревьев лесного древостоя широко применялся в дореволюционное время под названием коммерческая таксация.
Исходя из биотехнического принципа в лесной экономике показана возможность выполнения коммерческой таксации древостоя моделированием стоимостных и возрастных распределений лесных деревьев по текущим рыночным ценам на круглые лесоматериалы.
...
14 10 2026 9:46:35
 Статья в формате PDF
106 KB...
13 10 2026 2:18:21
 Статья в формате PDF
101 KB...
12 10 2026 19:54:58
 Статья в формате PDF
862 KB...
11 10 2026 1:48:30
 Статья в формате PDF
1463 KB...
10 10 2026 10:38:31
Статья в формате PDF 103 KB...
09 10 2026 16:11:29

 Статья в формате PDF
82 KB...
07 10 2026 11:57:39
 Статья в формате PDF
688 KB...
06 10 2026 5:38:26
 Статья в формате PDF
156 KB...
05 10 2026 16:13:52
 Статья в формате PDF
142 KB...
04 10 2026 5:53:54
 Статья в формате PDF
113 KB...
03 10 2026 0:53:11
 Статья в формате PDF
111 KB...
02 10 2026 8:25:32
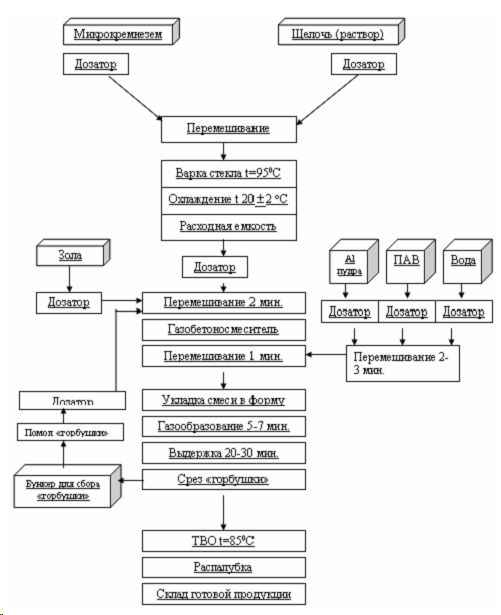 Со дня введения новых СНиПов проектировщики и строители оказались в весьма затруднительном положении. Если строить из традиционных материалов пришлось бы толщину стен увеличить чуть ли не втрое. На наш взгляд, наиболее полно отвечают всем требованиям изделия из газобетона, которые могут одновременно служить стеновым и теплоизоляционным материалом.
...
01 10 2026 22:14:28
 Статья в формате PDF
116 KB...
30 09 2026 3:10:56
 Статья в формате PDF
123 KB...
29 09 2026 13:30:24
 Статья в формате PDF
51 KB...
28 09 2026 20:23:20
 Статья в формате PDF
147 KB...
27 09 2026 21:29:29

 Статья в формате PDF
114 KB...
25 09 2026 11:40:56
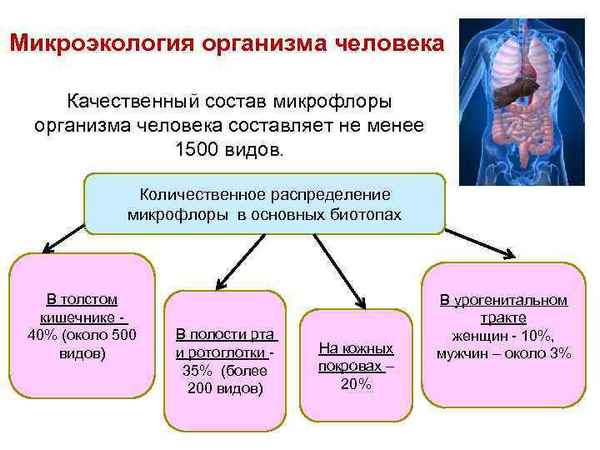 С экологических позиций излагается представление о человеке как метасистеме, состоящей из макроскопического (тело) и микроскопического (микробиота) компонентов. Последний определяется как биоценоз микроорганизмов — бактерий, простейших, микроскопических грибов и вирусов, встречающийся у здоровых людей. Приводятся некоторые количественные хаpaктеристики микробиоты человека: общее число микроорганизмов, суммарная биомасса, процентное содержание облигатной, факультативной и транзиторной составляющих, время, за которое происходит смена генерации микроорганизмов. Рассматриваются главные системоообразующие факторы, обеспечивающие целостность микробиоты: структурный, метаболический, генетический и информационный. Анализируются взаимоотношения микробиоты и макроорганизма в нормальных физиологических условиях и при патологии. Обсуждаются механизмы развития дисбиозов и патогенетически обоснованные подходы к их коррекции.
...
24 09 2026 11:15:40
 Статья в формате PDF
313 KB...
23 09 2026 10:23:19
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
