ТЕРМОДИНАМИЧЕСКИЕ ПРИНЦИПЫ ЭВОЛЮЦИИ ЖИВЫХ ОРГАНИЗМОВ
Также исследован процесс возрастания энтропии в твердом теле, в котором имеется градиент температур [3]. По определению изменение удельной энтропии равно
Используя для рассмотрения указанного процесса закон сохранения энергии в дифференциальной форме, имеющий вид уравнения неразрывности, было получено следующее выражение для производства энтропии [3]
где W¯ вектор плотности потока энергии. Выражение
- источник искомого приращения энтропии в единице объема в единицу времени.
В настоящей работе рассмотрено производство энтропии в адиабатически замкнутой системе, в которой наряду с градиентом температуры существуют внутренние источники тепла с производительностью q (Вт/м3).
Изменение удельной энтропии по-прежнему хаpaктеризуется выражением (2), а закон сохранения энергии в дифференциальной форме имеет вид уравнения теплопроводности [4]
которое можно преобразовать к виду
где λ = a·c·p - коэффициент теплопроводности.
Учитывая что сравнивая (3) и (6), получаем
Воспользуемся тождеством
или
Сравнивая (9) и (7), получаем
Проинтегрируем (10) по всему объему замкнутой системы
Согласно условиям решаемой задачи и по теореме Гаусса-Остроградского получим
Итак, имеем
Сравнивая выражения (3) и (4), отмечаем, что первый интеграл в правой части выражения (13) определяет приращение энтропии, связанное с наличием градиента температур, а второй интеграл в правой части выражения (13) определяет производство энтропии, связанное с производством тепла внутренними источниками.
В дифференциальной форме производство энтропии имеет следующий вид
В линейной области выражение для производства энтропии определяется выражением [3]
где термодинамические потоки,
- термодинамические силы.
С учетом (1), (15) выражение (14) может быть записано в виде:
где T1 - температура внеутреннего источника тепла,
Т2 - температура среды,
T1-T2 =δT1
C - удельная теплоемкость.
Как следует из (16), при временное измене-ние производства энтропии запишется в виде:
Очевидное соотношение, определяющее выделение тепла внутренними источниками запишется в виде
после преобразования получаем
Отток тепла от внутреннего источника можно записат также в виде:
где Q[c точкой] 0 - удельная теплопродукция при
Исходя из представлений равновесной термодинамики о сохранении баланса тепла, которое выполняется при , можно записать
что в свою очередь приводит к получению условия устойчивости термодинамической системы
При этом, как показано в (5), выражение (22) преобразуется к виду:
где коэффициент теплоотдачи, m - масса ограниченная поверхностью системы, n - поверхность системы.
Как указано в работе [7] производство энтропии в живом организме в состоянии покоя близком к слабонеравновесному хаpaктеризуется выражением
где T1 и T2 - температура живого организма и внешней среды, соответственно,
- величина полной теплопродукции живого организма
При этом производство энтропии в живом организме равно продукции энтропии во внешнюю среду.
Одновременно заметим, что при T1 -T 2=δT< T1, что соответствует условиям обитания живых организмов, выражение (24) может быть записано в виде
позволяющее заключить, что производство энтропии живых организмов в состоянии покоя достигается путем диссипации тепла при температуре тела живого организма T1.
С другой стороны, величина изменения теплопродукции может быть записана в виде [5,6]
где α - коэфиициент теплоотдачи живого организма к внешней среде,
П - поверхность тела живого организма.
В работе [7] доказано что величина α(t) есть убывающая функция времени, т. е. Из выражения (26) следует, что возможно сохранение величины . Тогда
что существенно для живого организма при сохранении состояния покоя не равного равновесному, из которого живой организм уже не может удалиться.
Таким образом, из выражений (24-27) следует, что возможно длительное существование в состоянии покоя, при этом , т. е. достигается состояние температурного гомеостаза и гомеостатирования среды обитания.
В филогенезе живых организмов величина П ограничена предельной массой (M) тела живого организма, т. к. известно, что отношение м/п есть величина постоянная, например, для гомойотермных организмов [5,6], что в конечном счете приводит к нарушению функций органов живого организма и его вырождению.
Однако из вышеуказанного следует, что если отношение м/п = const выполняется, или, например, значительному увеличению П соответствует незначительное увеличение M, длительность развития с сохранением пpaктически постоянно удельной теплопродукции может быть значительной.
В живом организме есть орган, для которого возможно выполнение данного условия - это мозг живого организма, значительному изменению поверхности которого соответствует значительно меньшее, чем для других органов тела, увеличение массы.
Этот путь эволюционного развития и использовали живые организмы, но больше всех преуспел человек, который смог в дополнение к температурному гомеостазу создать условия гомеостатирования внешней среды (жилища, одежда, применение огня), что в состоянии покоя привело к формированию мозга, позволяющего вести рассудочную деятельность.
Вышеизложенное составляет сущность термодинамических принципов эволюции живых организмов.
Выводы
Сущность необходимых термодинамических принципов эволюции живых организмов заключается в том, что, как доказано в статье, величина коэффициента теплоотдачи живого организма в филогенезе и онтогенезе является убывающей функцией времени в состоянии покоя, при постоянных температурах тела и внешней среды и для поддержания неизменной полной теплопродукции необходимо увеличение поверхности тела живого организма, что определяет удаление живого организма от состояния покоя.
При невыполнении в отдельном органе живого организма - мозге, известной в физиологии зависимости массы всего живого организма от его поверхности, например для гомойотермных организмов, возникает увеличение массы и поверхности мозга, позволяющее живым организмам, при достижении гомеостатирования внешней среды, эво-люционизировать путем формирования мозга не снижая удельной теплопродукции, что подтверждается эволюцией гомойотермных организмов.
Если формирование мозга отсутствует, то, при достижении гомеостатирования внешней среды, эволюция живых организмов приводит к увеличению поверхности тела живых организмов и, соответственно, к пропорциональному увеличению их массы, при этом происходит снижение удельной теплопродукции, что подтверждается гибелью гиперфауны.
Выживание наиболее приспособленных живых организмов при воспроизводимых условиях внешней среды не связано с достижением ими состояния покоя и с изменением удельной теплопродукции в филогенезе, что подтверждается конкуренцией биоценозов и составляет сущность идиоадаптации.
Полученные результаты позволяют выполнить термодинамическое обоснование пунктуализма эволюционного процесса, известного как ароморфоз Северцева, т. е. показать, что пунктуализм изменений связан с периодическим достижением гомеостатирования среды обитания живых организмов, при этом прогрессивные изменения в живом организме, возникают как результат противодействия состоянию покоя при гомеостатировании среды обитания.
Необходимо отметить, что человек достиг состояния температурного гомеостаза и гомеостатирования среды обитания в состоянии покоя, что привело к прогрессивному увеличению его размеров.
БИБЛИОГРАФИЧЕСКИЙ СПИСОК
- Левич, В. Г. Введение в статистическую физику / В. Г. Левич. - М.: Гостехиздат, 1954. - С. 141.
- Волькенштейн, М. В. Биофизика / М. В. Волькен-штейн. - М.: Наука, 1988. - С. 16-19, 307-308, 566-573.
- Ансельм, А. И. Основы статистической физики и термодинамики / А. И. Ансельм. - М.: Наука, 1973. - С. 355357.
- Исаченко, В. П. Теплопередача / В. П. Исаченко, В. А Осипова, А. С. Сукомел. - М.: Энергия, 1969. - С. 15-18,27-28.
- Шмидт-Ниельсон, К. Размеры животных: почему они так важны / К. Шмидт-Ниельсон. - М.: Мир, 1987. - 259 с.
- Проссер, Л. Сравнительная физиология животных: Пер. с англ. / Л. Проссер, Ф. Браун. - М.: Мир, 1967. - С. 11-123.
- Кузнецов, В. Г. Производство энтропии в адиабатической замкнутой системе с градиентом температуры и производством тепла и применение этих условий к термодинамической модели живых организмов / В. Г. Кузнецов // Биофизика. - 2003. - Т. 48. - Вып. 3. - С. 572-573.
 Статья в формате PDF
107 KB...
03 11 2026 16:30:51

 8 февраля 2004 года исполняется 75 лет со дня рождения и 60 лет педагогической, производственной деятельности академика Российской Академии естествознания, Академии эмалирования России, Заслуженного деятеля науки и техники РФ, почетного работника высшего образования России, доктора технических наук, профессора кафедры технологии керамики, стекла и вяжущих веществ ЮРГТУ (НПИ).
...
31 10 2026 11:53:57
 Статья в формате PDF
99 KB...
30 10 2026 8:15:18
 Статья в формате PDF
288 KB...
29 10 2026 2:49:51
 В работе рассматривается влияние краткосрочной изоляции в течение пяти суток на поведение крыс в открытом поле. Показано, что у крыс, находящихся в изоляции, уменьшается время выхода из центра, снижается сумма дефекаций и уринаций. Показатели ориентировочно-исследовательской реакции при повторном тестировании изменялись одинаково у изолированных и групповых крыс.
...
28 10 2026 14:22:47
 В связи со значительным ростом ВИЧ-инфекции на территории России все больше стало встречаться инвазий грибковой природы. При этом у ВИЧ-инфицированных частота носительства кандид в полости рта достигает 80%, тогда как у пpaктически здоровых она составляет 46-51%. Особенностью клиники кандидоза у ВИЧ-инфицированных является высокая частота поражения ротоглотки и пищевода при отсутствии поражения кожи и ногтей. Особую группу составили ВИЧ-инфицированные, у которых был диагностирован аспергиллез (80 заключенных женщин). У лиц с иммунодефицитом вначале поражаются грибом легкие, затем в процесс вовлекаются плевра, лимфатические узлы. Током крови аспергиллы могут заноситься в другие органы, образуя там специфические гранулемы, которые обычно абсцедируют.
...
27 10 2026 12:35:35
 Статья в формате PDF
122 KB...
26 10 2026 12:50:31
 Статья в формате PDF
137 KB...
25 10 2026 14:37:39
 Статья в формате PDF
116 KB...
24 10 2026 6:18:54
 Статья в формате PDF
661 KB...
23 10 2026 13:16:55
 Статья в формате PDF
117 KB...
22 10 2026 10:45:36
 Статья в формате PDF
127 KB...
21 10 2026 22:24:37
 Статья в формате PDF
133 KB...
20 10 2026 17:37:32
 Статья в формате PDF
121 KB...
19 10 2026 20:41:47
 Статья в формате PDF
120 KB...
18 10 2026 19:30:39

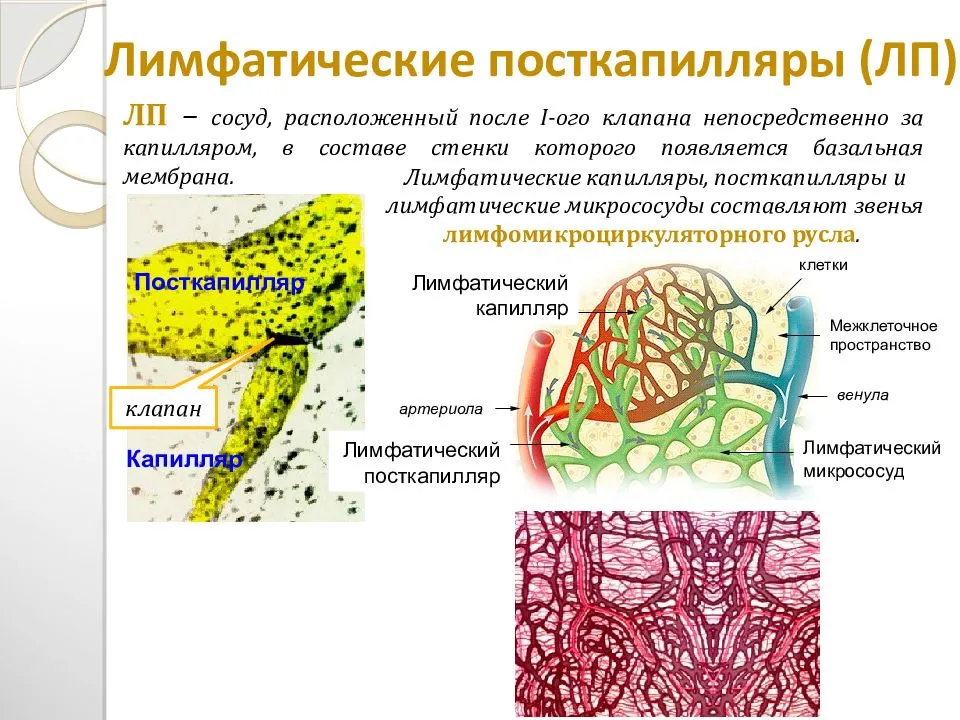 Лимфатические посткапилляры проходят от метаболических блоков с лимфатическими капиллярами до лимфатических сосудов первого порядка в контурном пучке микрорайона микроциркуляторного русла, чаще около собирательных венул или на разном удалении от них.
...
16 10 2026 2:49:26
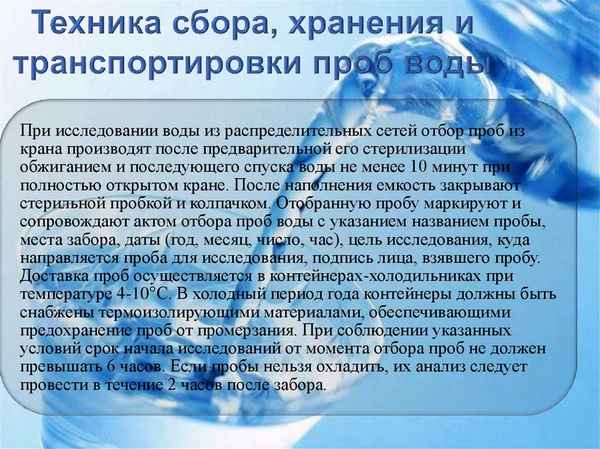 Одной из наиболее актуальных проблем современности является проблема обеспечения населения качественной питьевой водой. Для решения проблемы деффицита воды Прикаспийского региона в 1989 году был построен водовод «Астpaxaнь-Мангышлак», общей протяженностью 1041 км который берет свое начало из протоки Кигач, расположенной в дельте р. Волга. Биотестирование на дафниях в исходной воде и в воде, трaнcпортируемой по водоводу показало, что процент погибших дафний по сравнению с контролем составляет в зимний период 14%, а в весенний – 20%. В летний период процент погибших дафний явлется наиболее выским – 31,8% и к осени этот показатель снижается до 23,8%. Эти значения меньше 50%, то есть в соответствии с п.3.1.5 РД – 118-02-90 тестируемая вода не оказывает острого токсического действия на дафний.
...
15 10 2026 11:12:36
 Статья в формате PDF
254 KB...
14 10 2026 5:14:49
 Статья в формате PDF
214 KB...
13 10 2026 10:59:53
 Статья в формате PDF
100 KB...
12 10 2026 4:57:12
 Статья в формате PDF
236 KB...
11 10 2026 19:48:26
 Статья в формате PDF
187 KB...
10 10 2026 2:21:40
 Обсуждены методика и некоторые результаты моделирования вероятных конфигураций межфазных границ на поверхности композиционных материалов, полученные методом итерации треугольных генераторов на определенных сетках Кеплера-Шубникова.
...
09 10 2026 7:33:58
 Статья в формате PDF
272 KB...
08 10 2026 0:30:43
 Статья в формате PDF
132 KB...
07 10 2026 19:22:58

 Статья в формате PDF
308 KB...
05 10 2026 7:37:23
 Статья в формате PDF
133 KB...
04 10 2026 8:14:44
 Статья в формате PDF
263 KB...
03 10 2026 8:44:10
 Статья в формате PDF
137 KB...
02 10 2026 11:48:47
 Статья в формате PDF
156 KB...
01 10 2026 12:44:47
 Статья в формате PDF
112 KB...
30 09 2026 16:33:21
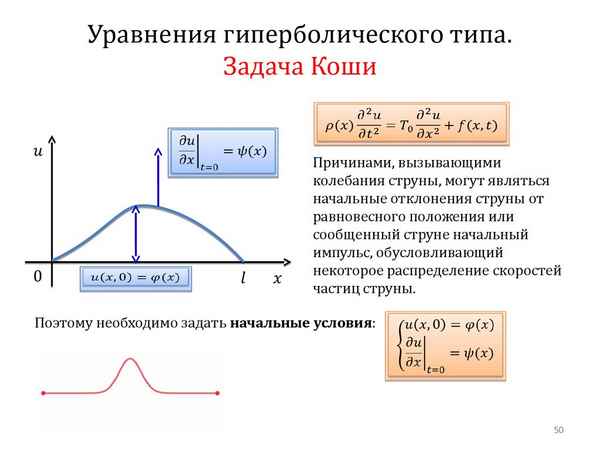 Исследована краевая задача со смещением для вырождающегося гиперболического уравнения. При определенных условиях неравенственного типа на известные функции доказана теорема единственности. Вопрос существования решения задачи сведен к вопросу разрешимости сингулярного интегрального уравнения, которое редуцируется к уравнению Фредгольма второго рода, безусловная разрешимость которого заключается из единственности решения задачи.
...
29 09 2026 3:50:15
 Статья в формате PDF
109 KB...
28 09 2026 20:58:42
 Статья в формате PDF
156 KB...
27 09 2026 3:53:22
 Статья в формате PDF
115 KB...
26 09 2026 7:10:19
 Статья в формате PDF
110 KB...
25 09 2026 16:18:14
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::