ОСОБЕННОСТИ ОБМЕНА НЕКУЛЬТИВИРУЕМЫХ ФОРМ ХОЛЕРНЫХ ВИБРИОНОВ
Некультивируемыми принято считать бактерии, которые под влиянием различных физико-химических или биологических факторов обратимо утрачивают способность расти на традиционных питательных средах. В настоящее время известно, что 1) переходить в некультивируемую форму (НФ) способны многие виды бактерий, в том числе и возбудители особо опасных инфекций: чумы [11], туляремии [9], холеры [13], 2) в некультивируемом состоянии (НС) клетки сохраняют вирулентность и способны к реверсии [12,15], 3) предполагается, что в НС возбудители различных заболеваний переживают нeблагоприятные условия окружающей среды, являясь потенциальным источником заражения [4,13]. Биологические свойства НФ, в том числе и холерных вибрионов, изучены недостаточно. В доступной литературе отсутствуют сведения об особенностях обменных процессов в некультивируемых клетках, в том числе и холерных вибрионов. Между тем они представляет большой научно-пpaктический интерес, так как являются ключевыми для понимания механизмов образования НФ и их выживания в нeблагоприятных условиях внешней среды.
Целью настоящей работы является обнаружение функционирования основных энергетических и биосинтетических путей в некультивируемых клетках холерных вибрионов. Для этого изучен катаболизм меченой глюкозы в реакциях цикла Кребса и активность ключевого фермента цикла Кальвина - рибулозо-1,5-дифосфаткарбоксилазы (РДФК).
Материалы и методы
Для работы использованы три штамма холерных вибрионов: Vibrio cholerae О1 17551, 17558 и V. cholerae О139 17673. По морфологическим, культуральным и биохимическим признакам культуры были типичными. Для получения НФ вибрионы в течение трех часов выращивали на 0,3% агаре Мартена, рН 7,6 с последующим пересевом на 2% агар Мартена, рН 7,7-7,8. Через 18 часов, в зависимости от целей эксперимента, агаровую культуру суспендировали в морской воде, 0,85% растворе NaCl, 1мМ растворе янтарной кислоты, 0,001% растворе витамина Е, 1мМ растворе каталазы или дистиллированной воде. В стеклянных флаконах емкостью 100 мл объем микробной взвеси доводили до 70 мл средой суспендирования и конечной концентрации 109 м.кл/мл. Приготовленные таким образом микрокосмы помещали при + 4оС без освещения. О динамике перехода в НС судили по количеству колониеобразующих единиц (КОЕ) на агаре, для чего каждые 5-7 дней из флаконов с дистиллированной водой и 14 дней из остальных делали высевы. Некультивируемыми считали пробы, в которых высевы на агар не выявляли растущих клеток, но витальным окрашиванием акридиновым оранжевым (разведение 1:5000) обнаруживали подвижные вибрионы, окрашенные в зеленый цвет. В переходных пробах часть клеток (102 - 105 м.кл/мл) еще сохраняла способность расти на питательных средах .
Пути диссимиляции глюкозы изучали радиореспирометрическим методом [16]. В опытах использовали 1С14-, 2С14 -, 6С14 -, 1,6С14 - глюкозу, а также 1.4C14 - янтарную кислоту фирмы «Изотоп». Реакционная смесь объемом 5 мл содержала 5×10⁹ м.кл/мл, суспендированных в 0,85% NaCl, 15 мМ глюкозы-носителя, 0,8 мккюри радиоактивной глюкозы, 60 мМ фосфатного буфера рН 7,8. Выделенную в процессе дыхания углекислоту улавливали 5 N NaOH. Инкубацию проводили в течение трех и семнадцати часов при 37оС. «Ловушки» помещали в 96о этиловый спирт, который затем переносили в сцинтилляционную жидкость. Радиоактивность исследуемых проб измеряли счетчиком Mark II (Searle, USA). Результаты выражали в имп/мин.
Для определение активности РДФК культуру концентрировали центрифугированием при 10000 g 15 мин. Клетки разрушали растиранием с песком, отмывали фосфатным буфером, рН 7,6. Реакционная смесь содержала 18мМ Трис-НСl, pH 8.0, 20мM MgCl2 × 6H2O , 10мM дитиотреитола, 4мМ рибозо - 5 - дифосфата и 500 мкл суспензии разрушенных клеток. Смесь инкубировали 30 мин при 30оС для превращения рибозо-5-фосфата в рибулозо-5-дифосфат под действием эндогенной фосфорибоизомеразы. В реакционную смесь добавляли 0,026мМ NaHC14 O3 , 6мМ АТФ, 0,6 мМ НАДН и инкубировали 5 мин. Реакцию останавливали 0,02 мл 100% трихлоруксусной кислотой. Центрифугировали 30 мин при 8000g, 200 мкл супернатанта помещали в 5 мл сцинтилляционной жидкости. Радиоактивность измеряли счетчиком Mark II. Активность фермента выражали в имп/мин.
Результаты и обсуждение
Углеводы являются важным источником энергии и углерода для микроорганизмов. Утилизация энергии углеводов клеткой происходит в цепи последовательных реакций фосфорилирования промежуточных продуктов, дегидрирования, переноса электронов на кислород или другие акцепторы. Механизм диссимиляции различных сахаров отражает не существование какого-либо специфического пути их распада, а лишь способность микроорганизма к синтезу некоторых ферментов, катализирующих превращение конкретных субстратов [5]. Поэтому изучение процессов диссимиляции глюкозы у НФ вибрионов позволяет судить о катаболизме углеводов в целом.
К настоящему времени известно три пути диссимиляции углеводов до С3-соединений и пирувата. Это гликолиз (или путь Эмбдена - Мейергофа - Парнаса), гексозомонофосфатный путь (пентозофосфатный цикл) и, встречающийся только у некоторых бактерий, путь Энтнера - Дудорова. Гликолиз и гексозомонофосфатный шунт функционируют у холерных вибрионов одновременно, обеспечивая клетку энергией и компонентами синтеза белков, жиров, нуклеиновых кислот. По гликолитическому пути расщепляется 89-93% глюкозы, а на долю гексозомонофосфатного шунта приходится 7-11% [1].
Установить метаболические пути, в которые вовлекается углевод, позволяет сопоставление количественного выхода радиоактивного СО2 в процессе распада 1С14 - и 6С14- глюкозы. Известно, что включение радиоактивных меток в углекислоту наблюдается при распаде 1С14 -- глюкозы по гексозо-монофосфатному пути (ГМФП). Точкой образования радиоактивного СО2 является реакция декарбоксилирования 6-фосфоглюконата, образующегося из глюкозо-6-фосфата. Использование в опыте 6С14 - глюкозы приводит к тому, что это атом, также как и первый (в отличие от остальных атомов) при распаде карбогидрата по пути Эмбдена-Мейергофа попадает в метильную группу пирувата, и при дальнейшем метаболизме в цикле Кребса судьба шестого атома углерода аналогична судьбе первого. Однако при распаде 6С14- глюкозы по ГМФП включение метки в СО2 на происходит, так как при декарбоксилировании 6-фосфоглюконата шестой углеродный атом переходит в состав рибулозо-5-фосфата. Обычно одинаковая радиоактивность СО2 наблюдается при диссимиляции 1С14 - и 6С14- глюкозы и указывает на расщепление молекул карбогидрата по пути Эбдена-Мейергофа (гликолиза) с последующей утилизацией продуктов распада в цикле Кребса (цикле ди- и трикарбоновых кислот).
Результаты изучения путей диссимиляции глюкозы исходных, переходных и НФ холерных вибрионов с использованием глюкозы, меченой по первому или шестому атомам, представлены в Таблице 1. Изучение динамики изменений катаболизма глюкозы в клетках холерных вибрионов, пребывающих в микрокосмах, показало, что в популяциях, в которых 102- 103 м.кл/мл сохраняют способность расти на агаре Мартена, наблюдаются значительные изменения утилизации углеводов. Также как и в исходных культурах, в переходных и НФ уровень радиоактивности СО2, выделенного в результате катаболизма глюкозы, меченой по первому и шестому атомам, был приблизительно равным.
Таблица 1.
Радиоактивность выделенного СО2 при диссимиляции глюкозы некультивируемыми штаммами V.cholerae eltor и их исходными вариантами (2 часа инкубации)
|
Штаммы |
Форма |
Время в НС |
Количество метки в % добавленной радиоактивности |
|
|
1С14- глюкоза |
6С14 - глюкоза |
|||
|
V. cholerae eltor 17551 |
исходная |
- |
23,9 |
16,8 |
|
перех. |
рост 105 |
0,04 |
0,039 |
|
|
V. cholerae eltor 17551 |
исходная |
- |
29,5 |
26,7 |
|
перех. |
рост 102 |
0,01 |
0,008 |
|
|
V. cholerae eltor 17551 |
исходная |
- |
26,4 |
22,7 |
|
НФ |
3 сут. |
0,007 |
0,006 |
|
|
V. cholerae eltor 17551 |
исходная |
- |
29,8 |
23,4 |
|
НФ |
14 сут. |
0 |
0 |
|
|
V. cholerae eltor 17551 |
исходная |
- |
21,9 |
19,6 |
|
НФ |
4 мес. |
0 |
0 |
|
|
V. cholerae eltor 17558 |
исходная |
- |
30,6 |
29,4 |
|
НФ |
4мес. |
0 |
0 |
|
Также как и в исходных культурах, в переходных и НФ уровень радиоактивности СО2, выделенного в результате катаболизма глюкозы, меченой по первому и шестому атомам, был приблизительно равным. Однако уровень радиоактивности переходных и некультивируемых проб после двух часов инкубации был значительно ниже, чем у исходных вариантов. Выделение радиоактивного углекислого газа пропорционально длительности пребывания в микрокосмах. Через два часа инкубации остаточный уровень радиоактивности обнаружен в трехдневных некультивируемых пробах, в то время как в четырнадцатидневных и более старых радиоактивный респираторный СО2 не обнаружен.
Увеличение времени инкубации с радиоактивной меткой до 17-18 часов в наших опытах привело к увеличению выхода меченого СО2 и позволило обнаружить его у 14-дневных НФ (Таблица 2).
Таблица 2
Радиоактивность СО2, выделенного при диссимиляции 1С14-глюкозы исходными и НФ холерных вибрионов при разном времени инкубации
|
Штаммы |
Время в НФ |
Форма |
Радиоактивность СО2 , имп/мин |
|
|
2часа |
17 часов |
|||
|
V. cholerae eltor 17551 |
- |
исходная |
21,840 |
157,580 |
|
-//- |
- |
переходная |
1,102 |
16,127 |
|
-//- |
3 сут. |
НФ |
0,007 |
2,420 |
|
-//- |
14 сут. |
НФ |
0 |
0,507 |
Выделение углекислоты в результате утилизации 1С14-глюкозы по сравнению с исходными культурами в НФ снизилось до 1,5% - 0,3% у трехдневных и четырнадцатидневных вариантов соответственно. В переходных пробах этот показатель составил 10,4%. Увеличение времени инкубации до 17 часов позволило обнаружить остаточный уровень радиоактивности и в 25-дневных пробах. Согласно данным литературы [7], суммарная скорость образования респираторного СО2 из атома 1С14-глюкозы, прямо хаpaктеризует скорость катаболизма по пентозофосфтному пути. Однако в системе гликолиз - цикл Кребса также может происходить эта реакция. Но превращение атома С1 в СО2 по пентозофосфатному пути является быстрым процессом (включает три ферментативных стадии), в то время, как соответствующие превращения в системе гликолиз - цикл Кребса предполагает прохождение всех реакций гликолиза и более чем однократного прохождения ферментативных реакций цикла Кребса, что ведет к замедленному выходу радиоактивного СО2.
С целью обнаружения функционирования цикла Кребса в НФ использовали 2С14-глюкозу и 1,4С14-янтарную кислоту. Известно, что второй углеродный атом глюкозы при превращении ее по пути Эмбдена-Мейергофа попадает в карбоксильную группу ацетата и выделяется в виде радиоактивной углекислоты при диссимиляции в цикле Кребса на уровне α-кетоглутарата на втором обороте цикла. Также как и при использовании глюкозы, меченой по первому и шестому атомам, выход радиоактивного углекислого газа в НФ значительно ниже, чем в исходных культурах. В результате утилизации 2С14-глюкозы он составил 20,2% от исходного, а 1,4С14-янтарной кислоты - 19% процентов Обнаружено, что 2С14- глюкоза включается в СО2 у четырнадцатидневных НФ, в то время, как 6С14-глюкоза не приводит к выходу радиоактивной углекислоты. Можно предположить, что у НФ холерного вибриона функционирует фрагмент цикла Кребса, где включается карбоксильная группа ацетата. Подтверждением этому предположению является включение 1,4С14 - янтарной кислоты, первый меченый атом которой превращается в 5-й углерод лимонной кислоты с последующим декарбоксилированием на уровне α-кетоглутарата, что приводит к выделению радиоактивного углекислого газа уже на первом обороте цикла. (Таблица 3).
Из данных литературы известно, что у некоторых гетеротрофов, например у E. coli [3], Y. pestis [10] может функционировать цикл Кребса, но в разорванном виде, таким образом, что одна часть реакций осуществляется от лимонной кислоты до α-кетоглутаровой, а вторая в обратном направлении - от щевелевоуксусной к янтарной. Запускается такая система реакций на основе метаболитов, получаемых в цикле Кальвина. Эти данные, а также сведения о функционировании цикла Кальвина в вибрионах, длительно пребывающих в морской воде [2] послужили основанием для попытки его выявления в НФ.
Таблица 3.
Радиоактивность СО2 (% от добавленной радиоактивности) при диссимиляции добавленного субстрата исходными и некультивируемыми клетками холерных вибрионов через 2 часа инкубации
|
Штаммы |
Время в НФ |
Субстрат |
|||
|
1,4С14-янтарная кислота |
2С14-глюкоза |
||||
|
исходная |
НФ |
исходная |
НФ |
||
|
V.cholerae eltor 17551 |
14 сут |
25,107 21,240 23,173 х=23,173 |
3,712 5,177 4,444 х=4,444 |
26,905 21,217 24,061 х=24,061 |
5,115 4,556 4,975 х=4,882 |
С этой целью проведена серия опытов по определению активности одного из двух ключевых ферментов цикла Кальвина - рибулозодифосфаткарбоксилазы (РДФК), систематическое название 3-фосфо-D-глицерат-карбоксилаза димеризующая. Синтез этого энзима клетками свидетельствует о функционировании пентозофосфатного цикла [6]. Указанный фермент катализирует фиксацию СО2 в результате чего образуется первичный стабильный продукт реакции - 3-фосфоглицерат. Функционирование цикла Кальвина обеспечивает клетку гексозами, пентозами для синтеза нуклеиновых кислот, фосфоглицериновым альдегидом, из которого в дальнейшем синтезируется пировиноградная кислота, используемая для образования аминокислот, липидов и других компонентов клетки.
Обнаружено (Таблица 4), что в двухмecячных НФ холерных вибрионов активно функционирует РДФК.
Таблица 4.
Активность рибулозодифосфаткарбоксилазы исходных, переходных и НФ хлерных вибрионов
|
Штаммы |
Среда микрокосма |
Форма |
Активность (имп/мин) |
|
V. cholerae eltor 17551 |
физ.р-р |
исходная |
1,833 |
|
-//- |
морская вода |
переходная |
9,800 |
|
-//- |
дист.вода |
НФ, 2 мес. |
7,716 |
|
-//- |
янт. к-та |
НФ, 2 мес. |
12,075 |
|
-//- |
витамин Е |
НФ, 2 мес. |
1,668 |
|
-//- |
каталаза |
НФ, 2 мес. |
3,969 |
|
V. cholerae 0139 17673 |
физ.р-р |
исходная |
1,764 |
|
-//- |
морская вода |
переходная |
7,980 |
|
-//- |
дист.вода |
НФ, 2 мес. |
3,634 |
|
-//- |
янт. к-та |
НФ, 2 мес. |
11,201 |
|
-//- |
витамин Е |
НФ, 2 мес. |
1,404 |
|
-//- |
каталаза |
НФ, 2 мес. |
8,660 |
Различий в активности фермента между штаммами не выявлено как у исходных, так и у переходных и НФ. Активность фермента в исходных пробах была на фоновом уровне. Существенные различия получены в пробах из микрокосмов с разным составом. Максимальная активность обнаружена в некультивируемой пробе с добавлением 1мМ янтарной кислоты. Несколько более низкие, но превышающие исходный уровень в 5,4-4,6 раз, значения получены для переходных вариантов в микрокосмах с морской водой. Минимальные значения активности обнаружены в микрокосмах, где в качестве антиоксиданта добавлен витамин Е. Таким образом, проведенные исследования позволяют заключить: Изменения в диссимиляции глюкозы происходят еще до утраты клетками способности образовывать колонии на питательных средах. Уменьшение количества и замедление выхода радиоактивного углекислого газа в НФ холерных вибрионов, вероятно, связано с перестройкой метаболизма, проявляющемся в сдвиге его в сторону гликолиза и разрывом цепей цикла Кребса, хаpaктерным для хемолитоавтотрофов.
Пребывание в условиях микрокосмов при низкой температуре индуцирует функционирования цикла Кальвина, что вероятно, обеспечивает клетку необходимыми пластическими материалами и способствует выживанию при отсутствии органических питательных веществ.
СПИСОК ЛИТЕРАТУРЫ
- Алексеева Л.П. Пути диссимиляции глюкозы, манозы и глюконата у неагглютинирующихся и Эль-Тор вибрионов. Автореф. дисс. ... канд. биол. наук. - Ростов-на-Дону, 1975.
- Бурша О.С., Каграманов В.С., Соколенко А.В. Определение активности рибулозодифосфаткарбоксилазы у инактивных вариантов Vibrio cholerae eltor. // Журн. микробиол., эпидемиоло. и иммунобиол. - 1999. - № 6.- С. 90.
- Вершигора А.Е. Общая микробиология. - Киев, «Выща школа». 1988 -342с.
- Гинцбург А.Л., Романова Ю.М. Некультивируемые формы бактерий и их роль в сохранении возбудителей сапронозов во внешней среде. // Журн. микробиол., эпидемол. и иммунобиол. - 1997. - №3. - С.116.
- Гoлyбинский Е.П. Дыхательный аппарат и окислительный метаболизм чумного микроба. Автореф. дис. ... док. мед. наук.Саратов, 1974..
- Готшалк Г. Метаболизм бактерий. М., «Мир», 1982, 310с.
- Доис Э. Количественные проблемы биохимии. М., «Мир», 1983 373с.
- Ломов Ю.М., Асеева Л.Е., Каграманов В.С. Диссимиляция глюкозы штаммами Л-форм холерных вибрионов. //Микробиол. журн. -1983. -Т.45. -№3. - С.42.
- Пичурина Н.Л. Эпидемиологические аспекты туляремии и совершенствование методов лабораторной диагностики (на примере Ростовской области). Автореф. дисс. ...канд.мед.наук - Саратов - 1999.
- Рублев Б.Д. Пути обмена глюкозы и глюконата и окислительное фосфорилирование у чумного микроба. Автореф. дисс.... канд. мед. наук , Ростов-на-Дону, 1972.
- Cyчков Ю.Г., Худяков И.В., Емельяненко Е.Н. и др. О возможности сохранения возбудителя чумы в почве в покоящейся форме (некультивируемой форме). // Журн.микробиол., эпидемиол. и иммунобиол. -1997. -№4. -С.42.
- Colwell R.R. Nonculturable but still viable and potentially pathogenic . //
- Int. J. Med. Microbiol.Virol.Parasitol.Infect.Dis. - 1993. -v.279. - N2. -p.154.
- Colwell R.R. Global climate and infections diseas: the cholera paradigm. //Scienc.- 1996.- V.274. -Dec.20.-P.2025
- Colwell R.R., Bryton P. R., Grimes D.J. et.al. Viable but nonculturable Vibrio cholerae and related pahtogenes in the environment: implication for the releas of genetically engineered microorganisms. // Bio/ Technology. - 1985. -V.3. -P.817.
- Nilsson L., Oliver J.D., Kjelleberg S. Resuscitation of Vibrio vulnificus from the viable but nonculturable state // J. Bacteriol., -1991.- V.173., -N16,- P.5054.
- Wang C.H., Stern J., Gilmour C.M. et.al. Comparativ study of glucose catabolism by radiorespirometrie method . // J. Bacteriol. - 1958. -V.76. -N1. - P.207.
 Статья в формате PDF
105 KB...
20 09 2026 14:39:31
 Статья в формате PDF
131 KB...
19 09 2026 6:50:24
 Статья в формате PDF
117 KB...
18 09 2026 0:42:38
 После деполяризации возбудимой мембраны изолированных нервных волокон и целого нерва постоянным током подпороговой силы регистрируется постэлектротоническая деполяризация, представляющая собой медленное восстановление поляризации к исходному уровню. Постэлектротоническая деполяризация у одиночных перехватов Ранвье и изолированного нерва обнаруживается не только в исходном состоянии, но и при полном блокировании натриевых каналов. Амплитуда и длительность постэлектротонической деполяризации целого нерва при подпороговой деполяризации увеличиваются пропорционально длительности приложенной деполяризации: после пропускания катодического тока продолжительностью 1 мс составили 0.093±0.004 мВ и 7.123±0.576 мс, после деполяризации длительностью 5 мс – 0.189±0.005 мВ и
23.212±1.186 мс, а после деполяризации длительностью 10 мс 0.220±0.011 мВ и 68.721±3.389 мс соответственно. При пропускании через нерв серии катэлектротонических потенциалов происходит суммация постэлектротонической деполяризации. На основании того, что постэлектротоническая деполяризация обнаруживается не только в исходном состоянии, но и при полном блокировании натриевых каналов, в качестве наиболее вероятного фактора, обусловливающего генерацию постэлектротонической деполяризации, рассматривается выход ионов калия.
...
17 09 2026 17:30:27
 Статья в формате PDF
127 KB...
16 09 2026 16:28:13
 Описаны причины развития и особенности лечения больных воспалительными заболеваниями лобных пазух в регионе Северного Кавказа по данным Ростовской ЛОР клиники и ЛОР кафедры Ставропольской Медицинской Академии. Рассмотрены направления в совершенствовании метода трепанопункции в этих клиниках.
...
15 09 2026 14:50:12
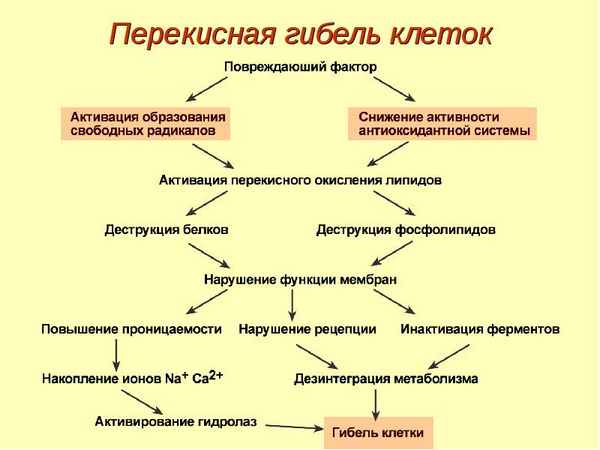
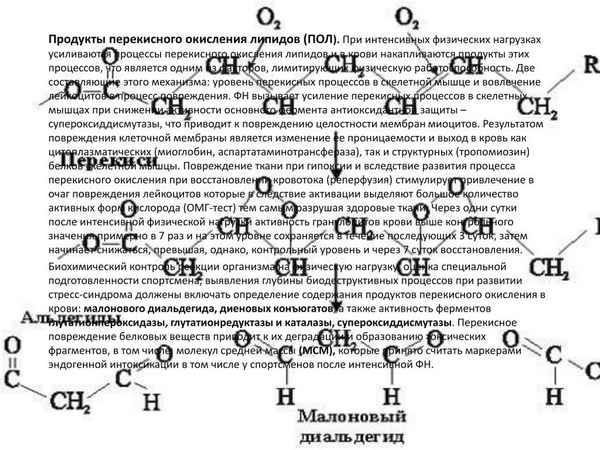 Изучено состояние процесса перекисного окисления липидов и антиокислительной системы в различных участках миокарда при его инфаркте у крыс с разной резистентностью к гипоксии. Выявлено что, в норме активность перекисного окисления липидов несколько выше у высокоустойчивых к гипоксии крыс по сравнению с низкоустойчивыми, однако активность антиокислительных ферментов, наоборот, выше у высокоустойчивых крыс. При коронароокклюзии интенсивность перекисного окисления липидов существенно повышается у низкоустойчивых к гипоксии крыс.
...
14 09 2026 11:42:21

 Статья в формате PDF
121 KB...
12 09 2026 19:54:21
 Статья в формате PDF
126 KB...
11 09 2026 11:57:18
 Статья в формате PDF
142 KB...
10 09 2026 12:42:18
 Статья в формате PDF
82 KB...
09 09 2026 16:58:43
 Статья в формате PDF
244 KB...
08 09 2026 8:42:20
 Статья в формате PDF
244 KB...
07 09 2026 9:18:33
 Работа посвящена методике расчетов электромеханического привода мешалки, установленной вертикально в аппарате для выщелачивания ёмкостью около 500 м3. Определены геометрические параметры вала и лопастей мешалки. Показана зависимость между скоростью вращения вала мешалки и мощностью. Установлены величины минимальной и рабочей частоты вращения для поддержания твердой фазы пульпы во взвешенном состоянии и пусковой момент двигателя привода мешалки.
...
06 09 2026 20:32:19
 Статья в формате PDF
104 KB...
05 09 2026 13:34:26

Статья в формате PDF 325 KB...
03 09 2026 16:22:57
 Цитомедины – это биологически активные соединения, продуцируемые органами и тканями, способные влиять на течение физиологических и биохимических процессов в организме для поддержания гомеостаза. Экспериментально выявлено, что пептиды (цитомедины), выделенные из тканей печени и сердца животных, влияют на адгезивные свойства клеток крови – увеличивают количество лейкоцитарно-эритроцитарных (ЛЭА), тромбоцитарнo-эритроцитарных (ТЭА) и лимфоцитарно-тромбоцитарных (ЛТА) агрегатов. Феномен лимфоцитарно-тромбоцитарной адгезии является ярким примером тесной взаимосвязи иммунитета и гемостаза, являющихся составными частями единой интегральной клеточно-гумopaльной системы защиты организма.
...
01 09 2026 5:55:10
 Статья в формате PDF
105 KB...
31 08 2026 13:55:25
 Статья в формате PDF
109 KB...
30 08 2026 18:19:19
 Статья в формате PDF
106 KB...
29 08 2026 0:10:32
Статья в формате PDF 265 KB...
28 08 2026 18:52:27
 Статья в формате PDF
214 KB...
27 08 2026 8:58:43
 Статья в формате PDF
114 KB...
26 08 2026 3:19:17
 Статья в формате PDF
120 KB...
25 08 2026 11:46:50
 Статья в формате PDF
111 KB...
24 08 2026 5:39:36
 Статья в формате PDF
112 KB...
23 08 2026 0:24:32
 Статья в формате PDF
241 KB...
22 08 2026 9:33:48
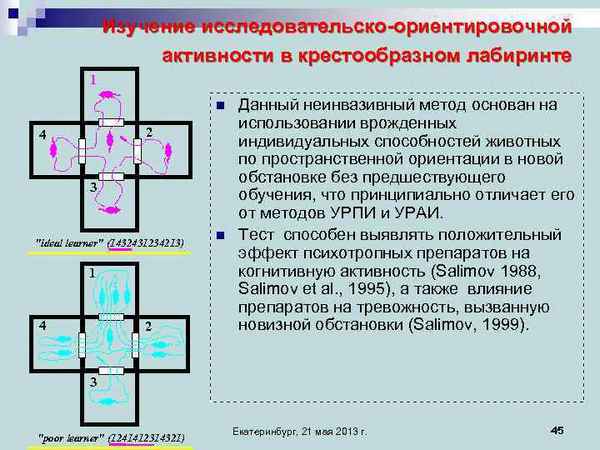
 В статье изложены результаты тестирования ориентировочно-исследовательского поведения крыс указанных линий, которые показали, что крысы линии WAG/Rij обладают более выраженной двигательной активностью и исследовательской деятельностью по сравнению с крысами линии Вистар.
...
21 08 2026 20:34:59
 Статья в формате PDF
125 KB...
20 08 2026 15:50:49
 Статья в формате PDF
112 KB...
19 08 2026 4:54:33
 При управлении автоматическими космическими аппаратами (КА) важной проблемой является обеспечение надежного и оперативного анализа и диагностирования работоспособности бортовых систем. Это позволит своевременно выявить негативные тенденции в работе бортовой аппаратуры и предотвратить их развитие.
Наибольшую актуальность проблема приобретает при управлении КА со сложными бортовыми системами, хаpaктеризующимися большим объемом телеметрических параметров, а так же при необходимости выдачи комaндных воздействий непосредственно в сеансах связи. Существующий опыт управления КА показывает, что в ряде случаев только своевременная выдача комaнд немедленного исполнения позволила обеспечить выполнение программы полета КА [1].
В настоящей работе предлагается общий подход к решению указанной проблемы, основанный на создании адекватных моделей анализа и диагностики функционирования бортовых систем и алгоритмов автоматизированной выработки рекомендаций по воздействию на КА. Ожидается, что использование в пpaктике управления таких моделей и алгоритмов даст возможность существенно повысить эффективность работы аппаратуры, в том числе за счет оперативного устранения возникающих на борту нештатных ситуаций.
...
18 08 2026 3:37:11
В работе представлены данные по усовершенствованию методов коррекции нарушений гемостаза у больных с гнойными синуситами при черепно-мозговой травме. Показано, что метод внутрипазушной гепаринотерапии, как компонент комплексного лечения пациентов с гнойными синуситами в остром периоде церебро-фациальной травмы, позволяет эффективно коррегировать гиперкоагуляционные нарушения гемостаза и осуществлять профилактику связанного с этим нарушения синдрома ДВС. ...
17 08 2026 12:11:17
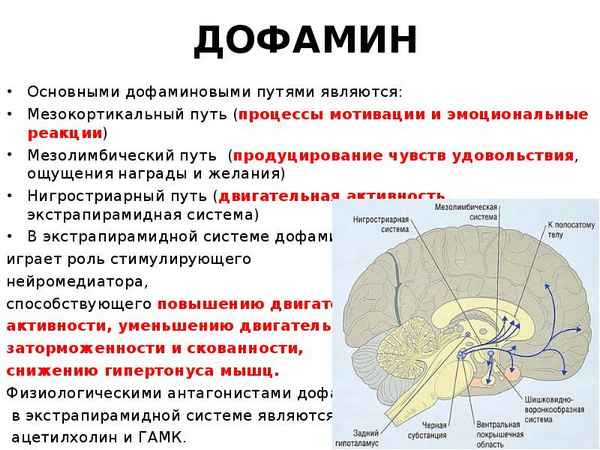 Дана хаpaктеристика локализации и цитологических особенностей cart-пептидсодержащих нейронов, выявленных на территории кортико-медиальной группировки миндалевидного комплекса мозга
...
16 08 2026 9:58:15
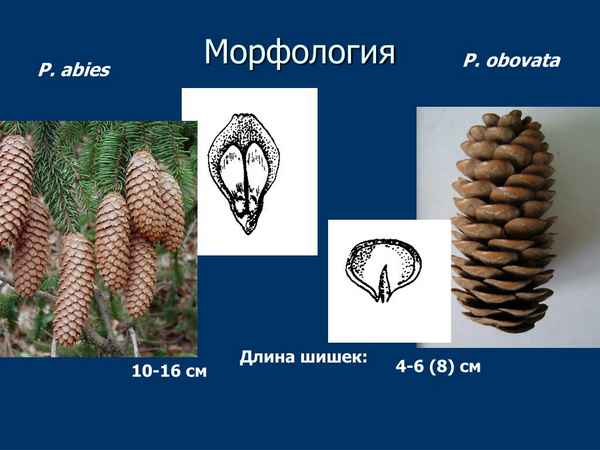 Применен метод дисперсионного анализа для изучения силы влияния различных комплексных природных факторов на изменчивость длины шишки ели сибирской, произрастающей в Уральской лесорастительной провинции. Показано, что наибольшее влияние на изменчивость длины шишки в этом районе имеют индивидуальные особенности деревьев, долгота местности и высота над уровнем моря.
...
15 08 2026 5:23:39
 Обучение любому иностранному языку начинается, как правило, с обучения фонетике. Каждый национальный язык имеет свою неповторимую индивидуальную фонетическую систему, которая говорящим на этом языке представляется самой удобной. Фонетическая система вьетнамского языка сильно отличается от фонетической системы русского. Для вьетнамских студентов работа по обучению произношению должна строиться с учётом особенностей вьетнамского языка. В статье были показаны всевозможные трудности в обучении фонетике русского языка вьетнамских студентов, начиная с обучения звуков русской речи до интонации. Вместе с тем были предложены способы устранения ошибок при обучении фонетике русского языка вьетнамских студентов.
...
14 08 2026 4:56:45
 Статья в формате PDF
213 KB...
13 08 2026 22:16:16
 Статья в формате PDF
183 KB...
12 08 2026 15:23:49
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
