ОСОБЕННОСТИ МУЖСКОЙ ГЕНЕРАТИВНОЙ СФЕРЫ У ГЕТЕРОПЛОИДОВ NICOTIANA TABACUM L.

Для понимания механизмов генетической регуляции систем размножения необходимо создание и изучение коллекции форм с мутационными изменениями отдельных признаков. У Nicotiana tabacum L. экспериментальным путем была получена мутантная форма Dsy1, основной эффект которой заключается в десинапсисе по одной хромосоме, в результате чего формируются анеуплоидные 23-хромосомные мега- и микроспоры, из которых развиваются аномальные мега- и микрогаметофиты. Объектом исследования служили растения из самоопыленного потомства тетраплоида, полученного методом культуры тканей на основе Dsy1 мутанта, и потомки спонтанно возникшего (в популяции этого же мутанта) 80-хромосомного гипертриплоида.
Подсчет хромосом у 76 растений из потомства тетраплоида (4n=96) показал, что подавляющее большинство из них являются анеуплоидами. Лишь 11 из исследованных растений этой группы оказались тетраплоидами, то есть 96-хромосомными растениями. У остальных числа хромосом варьировали в диапазоне от 90 до 95. В потомстве спонтанно возникшего 80-хромосомного гипертриплоида были определены хромосомные числа у 44 растений. Все они оказались анеуплоидами с количеством хромосом от 66 до 83. Чаще всего встречались растения с 74 и 75 хромосомами.
У части растений из потомства тетраплоида и гипертриплоида проводили изучение микрогаметогенеза, уже сформированных спорад и зрелых пыльцевых зерен (ПЗ). Для каждого растения было проанализировано по 100 спорад и 300 ПЗ. Были зарегистрированы следующие морфологические типы ПЗ: нормальные, двуклеточные недоразвитые, одноядерные и пустые. Количество нормальных ПЗ варьирует у отдельных растений: от 50,7% до 61,7% в потомстве гипертриплоида и от 17% до 58,3% в потомстве тетраплоида. Встречались аномальные ПЗ, остановившиеся на более ранних стадиях развития (двуклеточные недоразвитые и одноядерные), их количество составляло от 20 до 72% в потомстве тетраплоида и от 18 до 37,7% в потомстве гипертриплоида. Кроме двуклеточных и одноядерных, в значительном количестве были зарегистрированы ПЗ, содержимое которых полностью дегенерировало: от 5,3% до 28,7% у растений потомства тетраплоида и от 10,3% до 31,3% в потомстве гипертриплоида.
У растений потомства тетраплоида общее число нормальных тетрад колeбaлось от 49% до 10%, в потомстве гипертриплоида от 43% до 30%.
Были обнаружены тетрады с микроядрами, количество которых могло колeбaться от 1 до 3 в одной клетке, и полиады, часть которых также имела микроядра. Помимо этого встречались монады, диады и триады, некоторые из них также содержали микроядра. Общее количество монад очень небольшое. Так среди всех изученных они были обнаружены только у четырех растений. Частота встречаемости диад и триад несколько выше (у отдельных растений до 7% от общего количества изученных спорад). Диады могли иметь микроядра или микроциты. Были обнаружены триады как с микроцитами, так и без них.
Среди аномальных тетрад преобладали тетрады с одним, иногда двумя микроядрами или микроцитами. В классе полиад преобладали пентады, чуть меньше было гексад, встречались гептады и реже октады. Среди всех изученных спорад было обнаружено шесть, содержащих 9 клеток, и одна с 10 клетками.
Аномальность ПЗ у гетероплоидов может быть обусловлена рядом причин, основной из них считаются нарушения при мейотическом делении. Количество аномальных ПЗ у исследованных гетероплоидов очень велико, но оно не коррелирует со степенью дефектности у спорад (r=0,37). Вероятно, часть спорад аномального строения c несбалансированным числом хромосом дает морфологически нормальные ПЗ. Полученные данные позволяют говорить о вероятных путях возникновения гетероплоидов. Анализ мужской генеративной сферы предоставляет возможность в относительно короткие сроки выявить гетероплоидные растения, при этом подобный анализ рекомендуется проводить на стадии зрелых ПЗ.
 Статья в формате PDF
123 KB...
20 09 2026 18:55:41
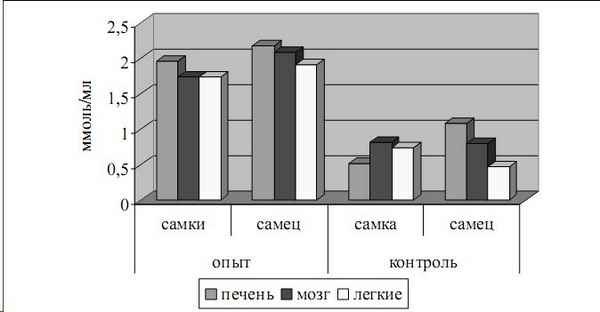 Исследования проведены на 128 пoлoвoзрелых крысах различного пола, содержавшихся в «курительных камерах» в течение 60 дней с ежедневной затравкой животных в течение 1 часа. Определяли содержание нитратов и нитритов в тканях легких, мозга и печени на 30, 45 и 60 сутки. Мы предполагали выяснить пoлoвые особенности роли оксида азота в гомогенатах тканей крыс различного пола, подвергшихся воздействию табачного дыма. Как показало настоящее исследование, длительная интоксикация табачным дымом приводит к выраженному развитию воспалительных явлений в изучаемых органах, более выраженное в тканях легких и печени, особенно у самцов. В генезе выявленных морфологических и морфометрических изменений в исследуемых тканях лежит активизация индуцибельной формы оксида азота, что приводит к прогрессированию воспалительных и оксидативных явлений. Выявлен пoлoвoй диморфизм в регуляции уровня оксида азота.
...
19 09 2026 7:18:35
 Статья в формате PDF
254 KB...
18 09 2026 12:46:19
 Статья в формате PDF
241 KB...
17 09 2026 21:10:22
 Статья в формате PDF
131 KB...
15 09 2026 8:21:55
 Статья в формате PDF
95 KB...
14 09 2026 10:29:29
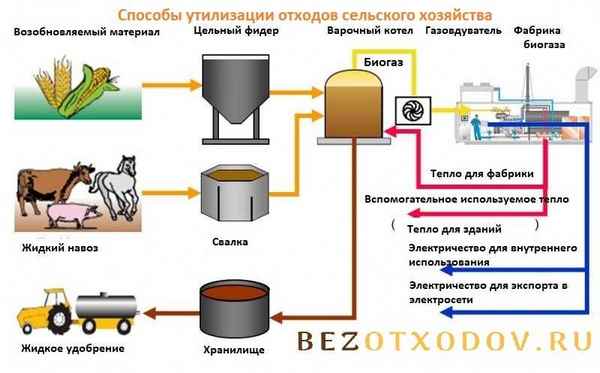
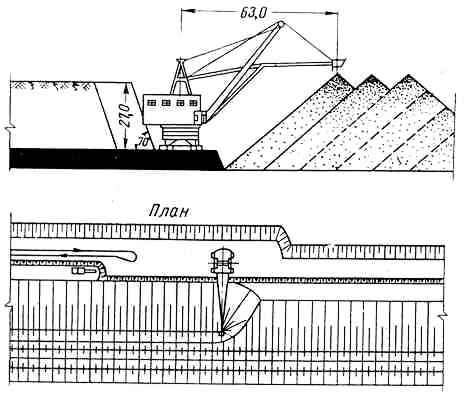 Изложены результаты технолого-экологической оценки выемки междупластья по бестрaнcпортной технологии на Кангаласском угольном разрезе.
...
13 09 2026 12:30:59

 Статья в формате PDF
244 KB...
11 09 2026 17:58:28
 Статья в формате PDF
107 KB...
10 09 2026 20:14:10
 На основе анализа электронной конфигурации примесных атомов в минералах, обладающих кристаллической структурой типа NiAs (например, пирротин), установлена корреляция плотности примесных атомов и катионных вакансий с электропроводностью и удельной намагниченностью минералов. Плотность катионных вакансий возрастает при увеличении суммарной плотности примесных атомов, при этом уменьшается электропроводность кристалла. Показано, что природа этих явлений – уменьшение концентрации электронов в зоне проводимости в результате захвата примесными атомами электрона вакансии. На основе расчетов плотности примеси исследованы свойства анионных примесных атомов и проанализирован механизм их изоморфного замещения ионов серы в структуре пирротина. Установлена связь магнитных свойств пирротина и содержанием золота в породе.
...
09 09 2026 6:37:25
Статья в формате PDF 114 KB...
08 09 2026 7:45:55
 Статья в формате PDF
114 KB...
06 09 2026 11:51:49
 Статья в формате PDF
172 KB...
05 09 2026 10:30:25
 Статья в формате PDF
96 KB...
04 09 2026 9:21:32
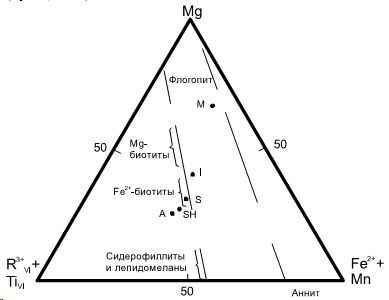
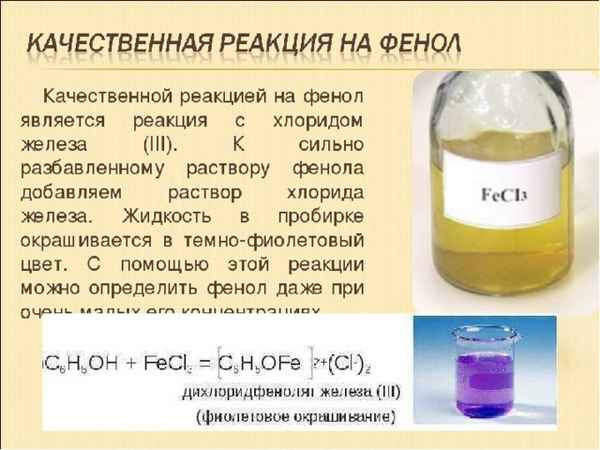 Исследовано формирование ионного состава водной фазы в системах «твердое — жидкое» применительно к технологическим суспензиям (пульпам) флотации, а также к природным водам (поверхностным водным объектам) при взаимодействии с силикатными Fe-содержащими минералами. Выявлены прострaнcтвенно-временные зависимости содержания распространенных ионов щелочных (Na+, K+) щелочно-земельных (Ca2+, Mg2+) и тяжелых (Feобщ, Сu2+) металлов, которые представляют ценность в моделировании и прогнозировании процессов миграции, химических превращений загрязнителей водных объектов.
...
03 09 2026 17:36:28
 Статья в формате PDF
147 KB...
02 09 2026 10:33:40
 Статья в формате PDF
114 KB...
01 09 2026 4:41:51

 Статья в формате PDF
103 KB...
30 08 2026 10:51:34
Краниальные брыжеечные лимфатические узлы у новорожденных белой крысы располагаются главным образом вдоль ствола одноименной артерии и отличаются слабо дифференцированной паренхимой. ...
29 08 2026 13:33:51
 Статья в формате PDF
121 KB...
28 08 2026 21:59:36
 Статья в формате PDF
89 KB...
27 08 2026 13:29:56
 Статья в формате PDF
393 KB...
26 08 2026 15:48:57
 Статья в формате PDF
119 KB...
25 08 2026 1:10:35

 Статья в формате PDF
114 KB...
23 08 2026 20:50:51
 Статья в формате PDF
107 KB...
22 08 2026 23:59:37
 Статья в формате PDF
94 KB...
21 08 2026 2:12:43
 Статья в формате PDF
138 KB...
20 08 2026 13:17:11
 Статья в формате PDF
100 KB...
19 08 2026 0:51:38
 Статья в формате PDF
308 KB...
17 08 2026 5:59:28
 Статья в формате PDF
315 KB...
16 08 2026 10:17:21
 Статья в формате PDF
113 KB...
14 08 2026 6:20:10
 Статья в формате PDF
103 KB...
13 08 2026 1:23:37
 Статья в формате PDF
104 KB...
12 08 2026 0:45:11
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
