ПРЕАДАПТАЦИИ К ЭВОЛЮЦИИ ЭКОСИСТЕМ
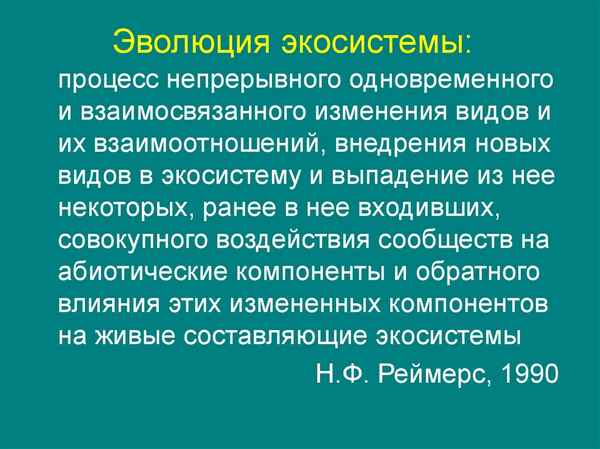
Большинство авторов сходятся на том, что виды - пионеры освоения новых территорий, т.е. виды, способные создавать новые сообщества, по своему происхождению связаны с интразональными (Чернов, 1984) или азональными (Длусский, 1981) экосистемами. Так, в процессе образования тундры, одной из самых молодых систем земного шара, решающая роль принадлежала растениям и животным, сформировавшимся в условиях ассоциаций, близких к тундровым, в зоне тайги или холодных степей (Чернов, 1984).
Выяснение путей возникновения и макроэволюции внутриэкосистемных комплексов степной зоны невозможно без анализа взаимосвязи между филогенией партнёров и появлением у них коадаптационных признаков. Степень таксономического разнообразия цветковых растений и мелких млекопитающих, составляющих, по нашему мнению, основу комплексов, различна: первые составляют группу из представителей 19 семейств растений, несомненно, имеющих разное происхождение, тогда как вторые представлены тремя видами мелких млекопитающих - представителей двух отрядов (Rodentia, Lagomorpha), имеющих также разное происхождение. Эти комплексы имеют полифилетическое происхождение, что является важным доказательством ведущей роли лимитирующих факторов конкретной среды обитания. Вероятно, предки грызунов и зайцеобразных обладали определённой «преадаптацией» к мутуалистическому взаимодействию с цветковыми растениями конкретных территорий или экосистем, поскольку растительный компонент в истории развития органического мира появился раньше, чем названные представители млекопитающих (цветковые растения появились в меловом периоде мезозоя, т.е. 35-137 млн. лет назад, а грызуны и зайцеобразные - в плейстоцене (70-55 млн. лет назад). В последующем в различных экосистемах сформировались устойчиво воспроизводимые коадаптивные комплексы, обладающие «генетической памятью», первоначально на основе трофических отношений. На открытых экосистемах из-за дефицита убежищ дополнительным системообразующим фактором стали норы млекопитающих.
Такие комплексы, сформированные на основе активной средообразующей деятельности различных компонентов экосистемы в целом, являются источником физико-химического разнообразия почв, что предопределяет формирование вариационного ряда комплексов, выступающих как подсистемы в отношении экосистемы в целом. В таких подсистемах, сформированных в пределах вещественно-энергетической нормы реакции экосистемы, на разных уровнях организации жизни могут выpaбатываться коадаптивные признаки.
На шкале градиента лимитирующего экологического фактора степей - влажности можно построить условный вариационный ряд коадаптивных комплексов интразонального и зонального хаpaктера.
Схема ряда коадаптивных комплексов, обеспечивающих динамическую устойчивость и возможные направления эволюции экосистем, может выглядеть так:
ИЗ(р) - интразональный коадаптивный комплекс - эксплерентов; ИЗ(к) - ксерофитный интразональный коадаптивный комплекс; ИЗ(гк) - интразональный коадаптивный комплекс галоксерофитов; ИЗ(гм) - интразональный коадаптивный комплекс галомезофитов; З(к) - зональный ксерофитный коадаптивный комплекс; З(км) - зональный ксеромезофитный коадаптивный комплекс; З(мк) - зональный мезоксерофитный коадаптивный комплекс; З(м1) - зональный мезофитный коадаптивный комплекс 1; З(м2) - зональный мезофитный коадаптивный комплекс 2; в некоторые из комплексов возможно проникновение новых для данной экосистемы видов и даже сообществ. Обратимые процессы в ряду обеспечиваются биотическим фактором в виде крупных копытных.
Схема начинается из интразонального происхождения коадаптивных комплексов, формирующихся на поселениях монгольской песчанки и по структуре плохо вписывающихся в любую другую структуру зонального происхождения, представляющую собой элемент пустынных экосистем и интразональных сообществ - рудерального и галофитного.
Затем в градиенте располагается непрерывный ряд коадаптивных комплексов зонального и интразонального хаpaктера. Ряд начинается от крайне ксерофитных вариантов коадаптивных комплексов на поселениях даурской пищухи. Далее следует коадаптивный комплекс, условно названный ксерофитно-галофитным, оформляющийся и на поселениях монгольской песчанки, и на поселениях даурской пищухи. Фактором, определяющим оформление комплекса, является более или менее сходная стратегия использования почвенных горизонтов для убежищ и близкие значения миграционных процессов вещества в начальный период оформления поселений этих животных. Для этого комплекса хаpaктерны высокие скорости миграции химического вещества в почвенных горизонтах, обогащение легкорастворимыми солями верхних почвенных горизонтов, образование просадок и прогибов на локальных участках поселения и увеличение в них значений влажности.
Интразональный ряд динамики коадаптивных комплексов завершается формированием комплексов с элементами осолонцованных лугово-степных элементов и осолонцованных остепнённых лугов, расположенных в крайне правой части градиента. Хаpaктеризуются повышенной влажностью, но из-за высоких значений солёности растительность имеет ксерофитные признаки.
Структурно-информационная сущность выше указанного вариационного ряда выступает как основа формирования экосистемных «преадаптаций» (новых ресурсных потоков по Dickman, 1999), необходимых для поддержания устойчивости через установление динамического равновесия отдельных структур в прострaнcтве и во времени и возможных эволюционных преобразований экосистемы при изменении начальных условий её существования (Ондар, 2001).
Изменение силы давления на среду основного элемента формирования коадаптивного комплекса, продиктованное биологией и экологией вида - эдификатора, влечёт за собой изменение биогеоценотического круговорота вещества и новую дифференциацию ресурсного потока. Системообразующие процессы ведут к прогрессивной организации экосистемы, при которой контроль и регуляция формирования коадаптивного комплекса или малых циклов осуществляются по принципу обратной связи от мест формирования коадаптивного комплекса (т.е. от вида-эдификатора) к тем частям системной структуры, которые инициируют её развитие. Однако ресурсная дифференциация осуществляется через экосистемный круговорот вещества и потому имеет экосистемную специфику, т.е. структурные особенности дифференциатов определяются физико-химической основой функционирования экосистемы ультpaконтинентальных сухих степей в конкретных физико - географических условиях.
В экосистеме формирующиеся коадаптивные комплексы достигают большой степени сложности и интенсивно взаимодействуют между собой. В этих взаимодействиях осуществляется взаимный контроль и регуляция функционирования всей экосистемы в целом. Следовательно, можно сказать, что новая дифференциация ресурсного потока строится на базе уже известных соотношений частей, определяемых экосистемным круговоротом вещества, интегрирующим и связывающим отдельные системные комплексы или малые циклы в целое. Это же условие неизбежно ведёт к усложнению и интеграции структур экосистемы в целом, определяя её устойчивость и преемственность организации.
В циклах и в экосистеме обнаруживается очевидная обратная связь, причём не только между экосистемой и формирующимися экосистемных малых ресурсными потоками, но и между самими ресурсными потоками, регулирующая и контролирующая свои конструкционные особенности. Эти элементарные регуляторные системы имеют, очевидно, иерархический хаpaктер - от организмов, вовлекаемых в сообщества, до популяций, которые подчиняются более общим правилам биогеоценотической регуляции, а последние, в свою очередь, охватываются регуляторными механизмами экосистемы в целом. Важно отметить, что в указанной цепи регуляции экосистемные элементарные структуры (коадаптивные комплексы) и их циклы (минисукцессии) весьма малоустойчивы (реактивны), однако малоустойчивость внутренних циклов при наличии внешней обратной связи вполне способна обеспечить стабильность экосистемных параметров в целом. Очевидно, эта обратная связь может обеспечиваться животным компонентом экосистемы. В большинстве случаев в степных экосистемах ими выступают крупные копытные.
Видимо, такая структура экосистемы ультpaконтинентальных сухих степей является неизбежным следствием крайне жёстких условий её существования, а возможность оформления внутренних малых циклов может обеспечивать её исторически стабильное функционирование. Иначе говоря, устойчивость экосистемы определяется не простым разнообразием видов, а разнообразием организованных системных структур эндоэкосистемного хаpaктера с различной экосистемной стратегией, функционирующих по принципу обратных связей с экосистемным круговоротом вещества. Изначально структурно - функциональная дифференциация малых циклов определяется чётким прострaнcтвенным расхождением видов-эдификаторов, основателей новых ресурсных потоков, диктуемым скудностью кормовой базы. Прострaнcтвенная дифференциация видов - эдификаторов по питанию пошла не по пути специализации к конкретным видам растений, а по пути специализации к экологическим группам растений, что сыграло немаловажную роль в снятии конкуренции за пищевые ресурсы видов-эдификаторов и привело к более полному вовлечению в экосистемный энергетический поток всех потенциальных энергетических запасов экосистемы.
Прострaнcтвенная динамичность расположения малых циклов (нор млекопитающих) и временные ограничения их существования выступают в качестве важнейших трaнcпортных путей миграции вещества, способствуют непрерывности экосистемного круговорота и являются фактором устойчивости экосистемы в целом, а также к возможным дальнейшим эволюционным изменениям экосистемы.
СПИСОК ЛИТЕРАТУРЫ
- Длусский Г.М. Муравьи пустынь. М.: Наука, 1981. 230 с.
- Ондар С.О. Механизмы функционирования ультpaконтинентальных степей: устойчивость и динамические процессы. Автореф. дисс. ... докт. наук. М.: Изд-во МГУ, 2001. 46 с.
- Чернов Ю.И. Эволюционный процесс и историческое развитие сообществ. Фауногенез и филоценогенез. М. 1984. С. 5-23.
- Dickman C.R. Rodent-ecosystem relationships: a review. In.: Ecologically based rodent manadgment. G. Singelton, L. Leirs and Z. Zhang (eds) /Australian Centre for International Agricultural Reseach. Canberra. 1999. P. 113-133.
 Статья в формате PDF
130 KB...
21 11 2026 8:52:44
 Статья в формате PDF
183 KB...
20 11 2026 5:42:47
 Статья в формате PDF
205 KB...
19 11 2026 23:51:12
 Статья в формате PDF
267 KB...
18 11 2026 20:31:21
 Статья в формате PDF
110 KB...
17 11 2026 6:20:12
 Статья в формате PDF
164 KB...
15 11 2026 3:48:31
 Статья в формате PDF
105 KB...
14 11 2026 16:53:48
 Статья в формате PDF
152 KB...
13 11 2026 0:57:42
 Статья в формате PDF
106 KB...
12 11 2026 14:11:47
 Статья в формате PDF
241 KB...
11 11 2026 13:57:22
 Статья в формате PDF
258 KB...
10 11 2026 20:57:45

 Рассмотрен процесс выделения бутадиен-стирольного каучука из латекса СКС-30 АРК с использованием в качестве наполнителя льняного и вискозного волокна. Установлено влияние содержания льняного и вискозного волокна различной длины, при различных расходах коагулирующего агента, на полноту выделения каучука из латекса. Определено оптимальное содержание волокна и его длина.
...
08 11 2026 22:21:16
 Статья в формате PDF
325 KB...
07 11 2026 14:38:47
 Статья в формате PDF
102 KB...
06 11 2026 4:13:20
 Статья в формате PDF
312 KB...
04 11 2026 18:57:16
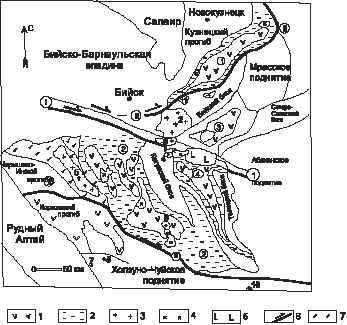 Приведены геологические, геохимические и петрологические данные по щелочным гранитоидам майорского комплекса среднего девона. В его составе описаны 4 фазы внедрения: 1) роговообманковые габбро, габбро-нориты и габбро-диориты; 2) кварцевые диориты, гранодиориты амфибол-биотитовые; 3) биотит-амфиболовые граниты, субщелочные и рибекитовые граниты; 4) субщелочные лейкограниты, лейкограниты. Петрогеохимическими особенностями гранитоидов майорского типа являются повышенная щёлочность и наличие щелочного амфибола – рибекита. Прострaнcтвенно и парагенетически с майорскими гранитами, относящимися к анорогенной геодинамической обстановке формирования, ассоциирует железорудное и редкоземельное оруденение и щелочные метасоматиты. В экзоконтакте с Майорским массивом сформировались везувиан-гранат-пироксеновые скарны.
...
03 11 2026 10:42:13
 Статья в формате PDF
109 KB...
02 11 2026 8:35:54
 Статья в формате PDF
272 KB...
01 11 2026 13:48:52
 Статья в формате PDF
130 KB...
30 10 2026 6:56:35
 В работе сформулированы принципы валеологического мировоззрения как образца устремлений, выполняющих ориентационную, нормирующую, прогностическую функции в отношении здоровья и здорового образа жизни.
...
29 10 2026 10:28:22
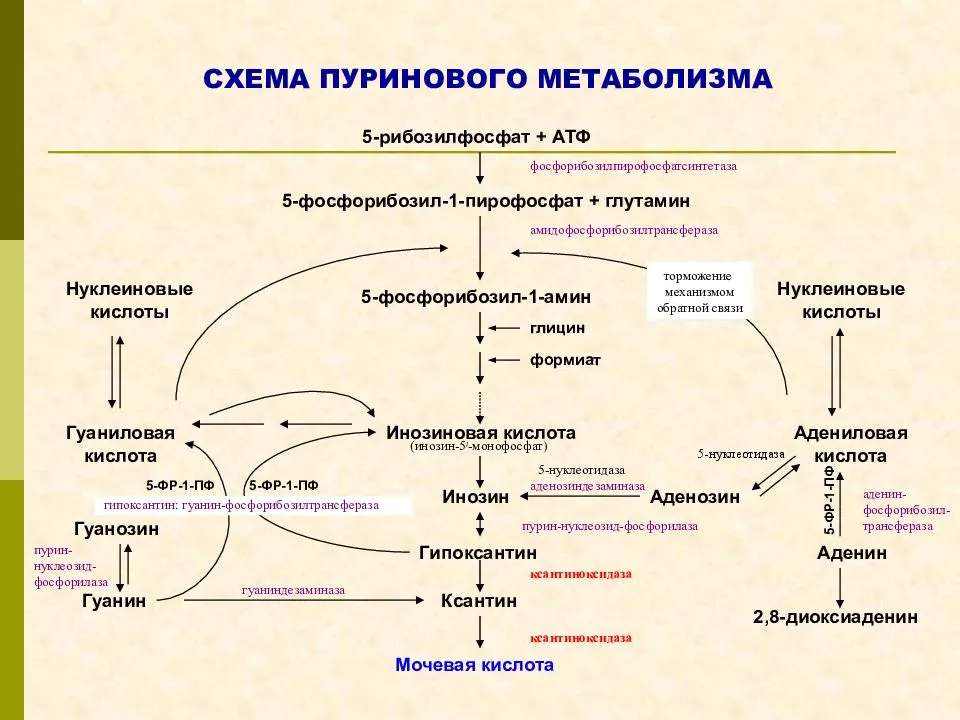 В эксперименте в сравнительном плане, изучено влияние радиационного облучения, ртутной интоксикации и гипотиреоза на систему иммунитета, на активность ферментов обмена пуриновых нуклеотидов: 5’-нуклеотидазы, АМФ-дезаминазы и аденозиндезаминазы, на активность ферментов антиоксидантной системы: супероксиддисмутазы (СОД), глутатионпероксидазы (ГПО), глутатионредуктазы в ткани печени, почек и в сыворотке крови. Установлены значительные сходства в механизме клеточных и метаболических эффектов радиации, гипотиреоза, ртутной интоксикации. Независимо от ткани и воздействующего на организм фактора (радиация, гипотиреоз, ртутная интоксикация) имеет место однотипные изменения активности супероксиддисмутазы, глутатионпероксидазы и глутатионредуктазы, что свидетельствует о том, что указанные воздействия являются стрессорными. Изменения в иммунной системе, обнаруженные при ионизирующем излучении, пpaктически однотипны изменениям иммунитета при гипотиреозе. При ртутной интоксикации в отличие от гипотиреоза и радиации имеет место снижение уровня В-лимфоцитов, что в какой-то мере объясняется особенностями эффектов ртутной интоксикации на систему иммунитета и ферменты метаболизма пуриновых нуклеотидов. В определенной степени эти различия можно объяснить разной степенью становления защитных механизмов и степенью целостности регуляторной функции адрено-тиреоидной системы.
...
28 10 2026 15:24:20
 Статья в формате PDF
136 KB...
26 10 2026 9:35:49
 Статья в формате PDF
121 KB...
25 10 2026 13:13:55
 Статья в формате PDF
114 KB...
24 10 2026 19:47:29
 Статья в формате PDF
99 KB...
22 10 2026 4:34:56
 Статья в формате PDF
117 KB...
20 10 2026 10:10:42
 Статья в формате PDF
113 KB...
19 10 2026 0:39:42

 Проведен анализ результатов научных исследований об использований труда заключенных филиалов ГУЛАГа в Казахстане для развития народного хозяйства Центрального Казахстана в 30–40-е годы ХХ века. На основе архивных данных были сделаны выводы о том, что заключенные филиалов ГУЛАГа, несмотря на тяжелое социально-экономическое, политически бесправное положение, испытывая все невзгоды, работали на промышленных предприятиях, сельском хозяйстве, на строительстве железных дорог, в голод и холод создавали экономическую базу для укрепления социалистического строя. Из основной категории заключенных выделялись женщины – жены так называемых «изменников Родины». Условия труда и содержание их в лагерях было намного тяжелее, чем у мужчин. Несмотря на это они занимались физическим трудом наравне со всеми заключенными, выполняли норму выработки, повышали производительность труда, не получая за это никаких ослаблении в труде.
...
17 10 2026 20:50:25
 Статья в формате PDF
206 KB...
15 10 2026 3:54:50
 Статья в формате PDF
105 KB...
14 10 2026 20:49:52
 В работе дана экологическая оценка возможных последствий на окружающую среду, жизнь и здоровье населения. Показано, что при решении выбора источника энергии необходимо учитывать не только экономические, но и экологические последствия возможного влияния объектов энергетики при строительстве и эксплуатации. Комбинированное производство энергии двух видов на мини–ТЭЦ способствуют гораздо более экологичному использованию топлива по сравнению с раздельной выработкой электроэнергии и тепловой энергии на котельных установках, но и повышению чистоты воздушного бассейна, улучшению общего экологического состояния окружающей среды. Интенсивное шумовое воздействие на организм человека нeблагоприятно влияет на протекание нервных процессов, способствует развитию утомления, изменениям в сердечно-сосудистой системе и появлению шумовой патологии, среди многообразных проявлений которой ведущим клиническим признаком является медленно прогрессирующее снижение слуха. В работе рассмотрено воздействие мини-ТЭЦ с дизельными и газопоршнеыми двигателями мощностью 1000 кВт на окружающую среду. Установлено что, шум, создаваемый электростанцией, состоящей их 4 газопоршневых двигателей мощностью 1000 кВт, будет ниже допустимого для территории, непосредственно прилегающей к жилым домам. Поэтому специальных мероприятий по снижению шума не требуется.
...
13 10 2026 18:27:59
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
