Теоретические аспекты эпигенного наследования в процессе регенерации в печени каспийских осетровых
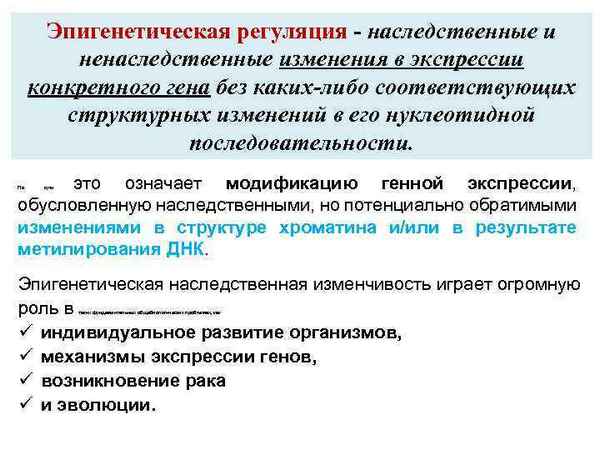
Известны факты экспериментальных работ о длительных модификациях, зарегистрированных в культуре соматических клеток и получивших название эпигенного наследования, то есть с наследованием негенетических изменений. От модификаций они отличаются тем, что происходят в результате изменения генной активности, а сама структура генетического материала сохраняется (Вахтин, 1980). Кроме того, регенерация проявляется в виде увеличения ДНП и РНП в печени в период регресса патологических признаков. Это также связано с активностью генов на всех этапах матричного процесса: репликации, трaнcкрипции и трaнcляции.
Следовательно, есть основание считать, что регенерация в печени современных осетровых происходит с наследованием по эпигенному типу.

 Статья в формате PDF
108 KB...
19 11 2026 19:59:53
 Статья в формате PDF
126 KB...
18 11 2026 5:22:53
 Статья в формате PDF
119 KB...
17 11 2026 12:54:57
 Статья в формате PDF
128 KB...
16 11 2026 14:42:57
 Статья в формате PDF
119 KB...
15 11 2026 15:39:43

 Статья в формате PDF
207 KB...
13 11 2026 15:29:53
 Статья в формате PDF
265 KB...
12 11 2026 8:17:17
 Статья в формате PDF
113 KB...
11 11 2026 1:49:10
 Статья в формате PDF
138 KB...
10 11 2026 17:31:34
 Статья в формате PDF
114 KB...
09 11 2026 23:20:12
 Статья в формате PDF
106 KB...
08 11 2026 20:45:54
 Статья в формате PDF
113 KB...
07 11 2026 3:55:54
 Статья в формате PDF
137 KB...
06 11 2026 17:13:54
 Статья в формате PDF
228 KB...
05 11 2026 10:49:45
 Статья в формате PDF
207 KB...
04 11 2026 22:20:47
 Статья в формате PDF
102 KB...
03 11 2026 0:23:22
 Статья в формате PDF
137 KB...
02 11 2026 9:13:29
 Статья в формате PDF
120 KB...
01 11 2026 0:27:12
 Статья в формате PDF
100 KB...
31 10 2026 14:10:52
 Статья в формате PDF
241 KB...
30 10 2026 14:15:46
 Статья в формате PDF
122 KB...
29 10 2026 0:19:11
 Статья в формате PDF
130 KB...
28 10 2026 12:16:18
 Методами ДТА и РФА исследованы фазовые равновесия в системе Tl2S-Tl2Te-Tl9SbTe6 (А). Построены политермическое сечение Tl2S-Tl9SbTe6 и изотермическое сечение при 400К фазовой диаграммы, а также проекция поверхности ликвидуса системы А. Установлено, что она является квазитройным фрагментом четверной системы Tl-Sb-S-Te и хаpaктеризуется образованием широких областей твердых растворов на основе исходных соединений. Поверхность ликвидуса системы А состоит из трех полей, отвечающих первичной кристаллизации твердых растворов на основе соединений Tl2S, Tl2Te и Tl9SbTe6. В работе также обсуждены особенности фазовых равновесий в аналогичных системах и, в частности, показано, что все шесть систем данного типа хаpaктеризуются образованием твердых растворов на основе исходных соединений, причем наиболее широкие области гомогенности имеют соединения типа Tl9BVX6.
...
26 10 2026 3:34:43
 После деполяризации возбудимой мембраны изолированных нервных волокон и целого нерва постоянным током подпороговой силы регистрируется постэлектротоническая деполяризация, представляющая собой медленное восстановление поляризации к исходному уровню. Постэлектротоническая деполяризация у одиночных перехватов Ранвье и изолированного нерва обнаруживается не только в исходном состоянии, но и при полном блокировании натриевых каналов. Амплитуда и длительность постэлектротонической деполяризации целого нерва при подпороговой деполяризации увеличиваются пропорционально длительности приложенной деполяризации: после пропускания катодического тока продолжительностью 1 мс составили 0.093±0.004 мВ и 7.123±0.576 мс, после деполяризации длительностью 5 мс – 0.189±0.005 мВ и
23.212±1.186 мс, а после деполяризации длительностью 10 мс 0.220±0.011 мВ и 68.721±3.389 мс соответственно. При пропускании через нерв серии катэлектротонических потенциалов происходит суммация постэлектротонической деполяризации. На основании того, что постэлектротоническая деполяризация обнаруживается не только в исходном состоянии, но и при полном блокировании натриевых каналов, в качестве наиболее вероятного фактора, обусловливающего генерацию постэлектротонической деполяризации, рассматривается выход ионов калия.
...
25 10 2026 19:24:21
 Статья в формате PDF
124 KB...
24 10 2026 20:59:22
 Статья в формате PDF
103 KB...
23 10 2026 1:11:52

 Статья в формате PDF
126 KB...
21 10 2026 3:33:56

 Статья в формате PDF
251 KB...
18 10 2026 5:46:45
 Статья в формате PDF
112 KB...
17 10 2026 3:26:49
 Статья в формате PDF
106 KB...
16 10 2026 7:54:46
 Статья в формате PDF
133 KB...
15 10 2026 9:24:22
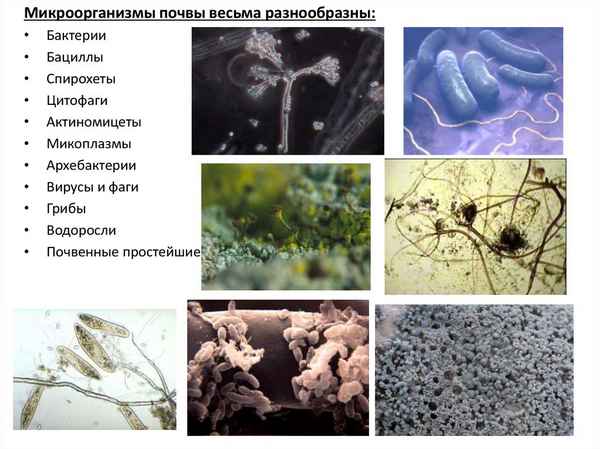 Установлены специфические особенности микробного населения почв мерзлотных горно-таежных техногенных ландшафтов Эльконского ураново-рудного района на территории Южной Якутии. Такие как высокая численность эколого-трофических групп микроорганизмов (2,0·103–7,6·107 кл/г), сопоставимая с плотностью микробов в лугово-степных почвах Центральной Якутии и особый хаpaктер распределения их по профилю почв в зависимости от содержания в них урана. В почве радиоактивно-загрязненного разреза с уменьшением содержания урана до 161 мг/кг наблюдается увеличение численности всех исследованных групп микроорганизмов. В остальных образцах данного разреза с увеличением содержания урана в почве наблюдается исчезновение или спад численности микроорганизмов на 1–2 порядка. В отличие от загрязненного разреза в почве нативного ландшафта численность микроорганизмов остается достаточно высокой по всему почвенному профилю.
...
14 10 2026 21:38:46
 В настоящее время важно пройти сложнейший этап перехода к новому типу социально-экономического развития быстро, компетентно, опираясь на собственные творческие возможности.
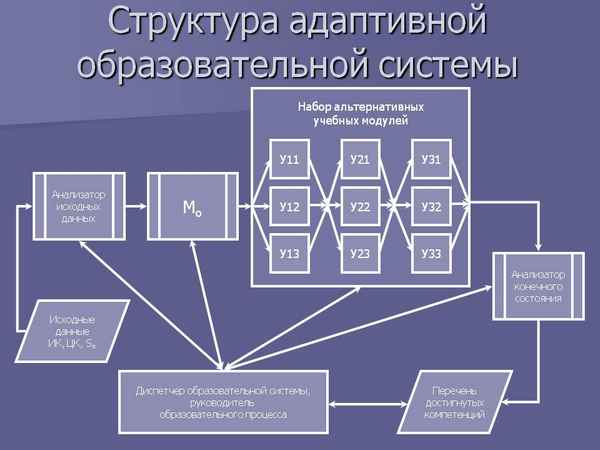
Именно этим целям служит разработанная нами модель педагогических основ формирования целостного образовательного прострaнcтва, основу которого составляет внедрение непрерывного образования в интегрированном профессиональном учебном заведении.
Моделирование целостного образовательного прострaнcтва осуществлялось нами через уточнение таких понятий, как «интеграция», «межпредметные связи», «взаимосвязь», интегративно-педагогические закономерности, интегративная деятельность, через изучение опыта зарубежных исследователей, решающих проблемы педагогической интеграции.
...
13 10 2026 20:55:30
 Статья в формате PDF
129 KB...
12 10 2026 14:40:57
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
