АНАТОМИЯ ПОЯСНИЧНЫХ СТВОЛОВ БЕЛОЙ КРЫСЫ
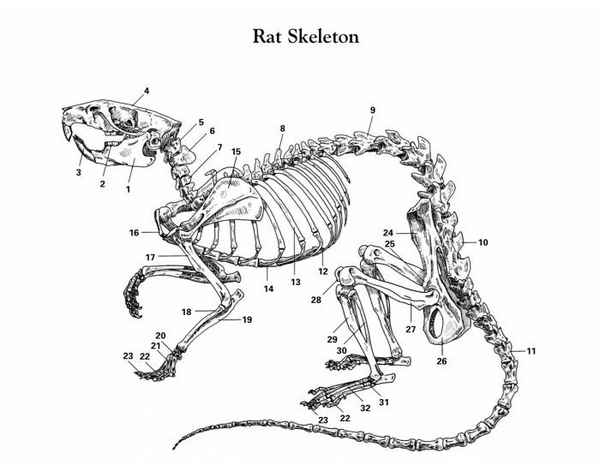
Строение поясничного лимфатического русла (ПЛР) белой крысы описано в единичных работах и противоречиво (Жданов Д.А., 1942; Иосифов И.М., 1944; Рахимов Я.А., 1968). Принято считать, что у крысы поясничные стволы (ПС) начинаются от подвздошных или каудальных поясничных лимфоузлов (ЛУ). Мной проведено исследование строения ПЛР у 100 белых крыс обоего пола 3-8 мес после инъекции синей массы Герота.
У крысы ЛУ гораздо меньше, чем у человека. Подвздошные ЛУ обнаружены у 63% крыс, чаще справа (50%), обычно один, редко два. Напротив, каудальные левые поясничные ЛУ более постоянны (100%) и многочисленны, чем правые (60%). Они находятся около бифуркации аорты. Краниальные поясничные ЛУ (левые - 94%, правые - 90%) размещаются около почечных ножек. По синтопии левые поясничные ЛУ являются латероаортальными, каудальные правые - латерокавальными, краниальные правые - чаще ретрокавальными, реже - интераортокавальными. Поясничные ЛУ - чаще одиночные, особенно каудальные, среди краниальных левых 2-3 ЛУ встречаются чаще, чем среди правых. Общее количество поясничных ЛУ крысы колeблется в пределах от 3 до 11 (5,9±0,4), наиболее постоянными и многочисленными оказываются левые латероаортальные ЛУ. Средние поясничные ЛУ редко встречаются: прекавальные - у 4% крыс, започечные - у 6% (у самцов). Между каудальными (а в их отсутствие - подвздошными) и краниальными поясничными ЛУ протягиваются крупные лимфатические сосуды, которые я назвал межузловыми поясничными стволами (МУПС) - правый и левый, иногда - средний (16,6±6,8% крыс). Между МУПС образуются непостоянные (40,0±8,9%) полиморфные анастомозы, вдвое реже, чем между правыми и левыми поясничными ЛУ человека. Поэтому сплетениевидная конструкция ПЛР у крысы встречается в 8,2 раза реже, чем у человека, а комбинированная (с элементами сплетений) - в 1,9 раза реже. Сплетения обычно находятся в краниальной (на уровне ПС - 16,6±6,8% крыс) и каудальной частях ПЛР (около бифуркации аорты - 20,0±7,3% крыс).
В отличие от человека, у крысы цистерна грудного протока (ГП) встречается постоянно. Ее главным корнем служит левый ПС, дополнительными - правый ПС (93,3±4,6% крыс) или средний ПС (6,7±4,6%), кишечный ствол (КС - 66,7±8,6%) - чревный, брыжеечный или смешанный. У 70% крыс КС, чаще брыжеечный, принимает участие в формировании левого ПС, который обычно огибает брюшную аорту с вентральной стороны. Они образуют сплетение или общий ствол. Д.А. Жданов (1945) обнаружил слияние КС с добавочным левым ПС в общий ствол у 6% людей. Когда левый ПС представлен 2-3 сосудами (13,3±6,2% крыс), хотя бы один из них огибает брюшную аорту с дорсальной стороны. Правый ПС крысы находится позади задней полой вены и / или в интераортокавальном промежутке. У 78,5±7,8% крыс он представлен 1 сосудом - в 4 раза чаще, чем у человека, у которого он чаще неодиночный. Левый ПС также одиночный у большинства крыс (56,6±9,1%), но реже, чем правый ПС, и в 1,6 раза реже, чем у человека, часто бывает двойным (30,0±8,4% крыс) и тройным (6,7±4,6%). ПС у крысы чаще всего начинаются от краниальных поясничных ЛУ, около почечных ножек, на уровне II-III поясничных позвонков, т.е. на позвонок каудальнее, чем у человека. ПС могут начинаться от каудальных поясничных и/или подвздошных ЛУ, около бифуркации аорты: левый - у 10,0±5,5% крыс, средний - у 6,7%, правый - у 1%, обычно когда отсутствовали краниальные поясничные ЛУ определенной группы. ПС могут служить ветвями МУПС. У 12% крыс обнаружена продольная цистерна одного ПС или поперечная цистерна, совместная для 2-3 ПС при непостоянном участии КС, расположенная каудальнее цистерны ГП. У 33,6% крыс цистерна ГП, обычно конусовидная, длинная, деформирована в основании почечной артерией, образует каудальные дивертикулы, вентральные - это расширения устьевых отрезков корней цистерны (левого ПС и КС). Они подобны цистернам, переходящим с правого ПС на начало ГП у человека (Петренко В.М., 1995). У 16,6±6,8% крыс обнаружено сплетение ПС - в 3,5 раза реже, чем у человека.
Заключение
ПЛР у белой крысы имеет, в отличие от человека, магистрализованное в разной степени строение, особенно при сравнении каудальных (нижних) отделов их ПЛР. Это связано с видовыми особенностями анатомии поясничных ЛУ: у крысы их в 4,35 раза меньше, размещаются они разрозненными, компактными, непостоянными группами - около бифуркации аорты и почечных ножек, на позвонок каудальнее, чем у человека. В этой связи ПС крысы начинаются на позвонок каудальнее, чем у человека, а постоянный КС достигает ПС, обычно левого, что обеспечивает, вероятно, его постоянство и частое преобладание над непостоянным правым ПС по диаметру. Сплетения ПС встречаются у крысы гораздо реже, чем у человека. Если у человека поясничные ЛУ вместе с лимфатическими сосудами обычно составляют сплетениевидное или комбинированное со сплетениями ПЛР, то у белой крысы краниальные и каудальные поясничные (а в отсутствие последних - подвздошные) ЛУ соединяются посредством МУПС - образований, нехаpaктерных для ПЛР человека. Низкое начало ПС крысы от подвздошных или каудальных поясничных ЛУ, как это указывается в литературе, встречается редко, обычно когда отсутствуют краниальные поясничные ЛУ или ПС оказывается ветвью МУПС. В этой связи обнаружен непостоянный средний ПС крысы.
 Статья в формате PDF
152 KB...
10 10 2026 1:24:13
 Статья в формате PDF
127 KB...
09 10 2026 7:50:16
 Статья в формате PDF
232 KB...
08 10 2026 12:41:41
 Статья в формате PDF
115 KB...
07 10 2026 21:30:23
 Статья в формате PDF
110 KB...
06 10 2026 6:28:37
 Статья в формате PDF
134 KB...
04 10 2026 2:10:51

 Статья в формате PDF
243 KB...
02 10 2026 15:43:41
 В эксперименте на пoлoвoзрелых крысах Wistar исследованы особенности регенерации суставного хряща коленного сустава после имплантации в зону повреждения гранулированного минерального компонента костного матрикса (МККМ), полученного по оригинальной технологии. Установлено, что МККМ имеет упорядоченную высокопористую структуру, близкую к естественной архитектонике костного матрикса и химический состав, соответствующий минеральному составу кости. МККМ обладает выраженными хондро- и остеиндуктивными свойствами, обеспечивает пролонгированную активизацию репаративного процесса, ускоренное органотипическое ремоделирование и восстановление поврежденного суставного хряща.
...
30 09 2026 9:47:48
 Статья в формате PDF
111 KB...
29 09 2026 21:37:21
 Статья в формате PDF
220 KB...
28 09 2026 22:52:43
 Статья в формате PDF
107 KB...
26 09 2026 4:47:47

 Статья в формате PDF
98 KB...
24 09 2026 1:50:46
 Статья в формате PDF
116 KB...
23 09 2026 2:22:39
 Статья в формате PDF
273 KB...
22 09 2026 16:10:45
 Статья в формате PDF
104 KB...
21 09 2026 8:43:45
 Статья в формате PDF
244 KB...
20 09 2026 4:16:43
 Статья в формате PDF
270 KB...
19 09 2026 14:58:52
 Статья в формате PDF
269 KB...
18 09 2026 1:15:41
 Статья в формате PDF
256 KB...
17 09 2026 11:45:35
 Статья в формате PDF
268 KB...
16 09 2026 2:52:32
 Рассматриваются особенности изменения растительности и почв на протяжении пяти историко-экологических этапов трaнcформации восточноевропейских степей во второй половине голоцена. Получены оценки поступающей в почву фитомассы, величина изымаемой продукции (в массовом выражении и через энергетические эквиваленты), а также величины энергии, формируемой в процессе гумусообразования. Установлено, что за 5000 лет отношение энергии расхода-прихода растительного вещества изменилось от 1:28 до 1:0,4, а ежегодное поступление гумуса в почвы снизилось с 5,4 до 1,6 МДж/кв. м.
...
15 09 2026 8:23:26
 Представленный материал является предварительной попыткой изучить направления работы, результаты исследований и определить их значение для развития современных агротехнологий в экстремальных климатических условиях, а также конкретный вклад специалистов и ученых полярников в развитие полярного овощеводства в истекшем столетии. Архивные материала, включающие некогда засекреченные отчеты с.-х. опытных станций и опopных пунктов академических структур, Главсевморпути и МТБ содержит значительный и не потерявший своей актуальности научно-исследовательский материал, накопленный специалистами и учеными предыдущих поколений, но элиминированный из памяти социальной истории отечественной науки и техники. Исследование и осмысление этих материалов будет способствовать развитию современного научного овощеводства.
...
14 09 2026 13:11:19
 Статья в формате PDF
126 KB...
13 09 2026 16:14:39
 Статья в формате PDF
95 KB...
11 09 2026 23:46:52

 Статья в формате PDF
108 KB...
09 09 2026 18:28:41
 Статья в формате PDF
128 KB...
08 09 2026 8:32:17
 Статья в формате PDF
143 KB...
07 09 2026 3:19:53
 Статья в формате PDF
101 KB...
06 09 2026 8:30:28
 Статья в формате PDF
312 KB...
05 09 2026 18:50:30
 Статья в формате PDF
140 KB...
04 09 2026 3:15:23
 Статья в формате PDF
92 KB...
03 09 2026 2:28:15
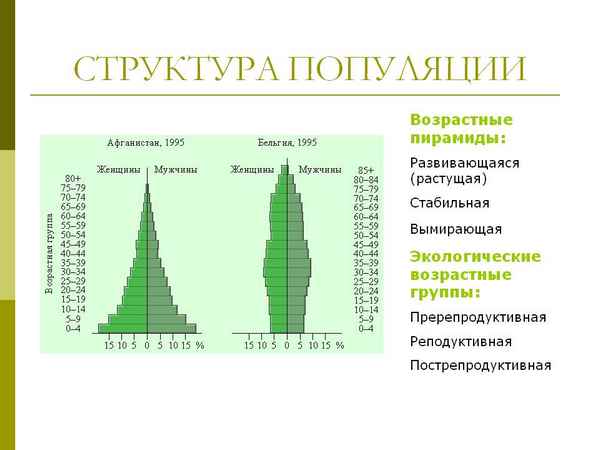 Изучены онтогенез и возрастная структура ценопопуляций многолетних травянистых поликарпических видов, относящихся к различным типам экобиоморф: стержнекорневых – дягиль лекарственный (Angenica archangelica L.) и цикорий обыкновенный (Cichorium intybus L.) и длиннокорневищных – вязель разноцветный (Coronilla varia L.).В онтогенезе выбранных видов выделены следующие 4 периода и 9 возрастных состояний: 1). период первичного покоя (покоящиеся семена); 2). виргинильный период (проростки, ювенильное, имматурное, виргинильное); 3). генеративный (молодое, средневозрастное, старое генеративное); 4). сенильный (сенильное).
Изучение возрастной структуры ценопопуляций данных видов было проведено в сравнительно-георафическом аспекте с учетом приуроченности к определенным типам растительных сообществ. Установлено наличие полночлeнных возрастных спектров, представленых прегенеративными, генеративными и сенильными растениями с преобладанием молодых вегетирующих особей. Преобладающим типом самоподдержания дягиля и цикория является семенное, а вязеля – вегетативное размножение.
Отмечено, что возрастные спектры ценопопуляций выбранных видов имеют адаптивный хаpaктер, заметно меняются в зависимости от условий внешней среды и антропогенного воздействия и отражают флуктуационный хаpaктер динамических процессов в фитоценозах.
...
02 09 2026 0:43:49
 Статья в формате PDF
133 KB...
01 09 2026 3:56:20
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::