ГИСТОХИМИЯ NADPH-ДИАФОРАЗЫ РЕПРОДУКТИВНОЙ СИСТЕМЫ САМЦОВ КРЫС В НОРМЕ И ПРИ ВОЗДЕЙСТВИИ НЕБЛАГОПРИЯТНЫХ ФАКТОРОВ
стоящей работе исследовали локализацию и активность NADPH-d репродуктивной системы самцов крыс в норме, а также при воздействии нeблагоприятных факторов (стресс, алкогольная и марганцевая интоксикация) в условиях острого и хронического эксперимента.
Исследование выполнено на 18 грызунах (самцы белых крыс линии Wistar в возрасте 3-5 месяцев с массой тела 200 - 250г), разделённых на 6 групп и подвергнутых воздействию: а) острого (3) и хронического (3) холодового стресса (20º, 20 мин. однократно, а также ежедневно в течение 10 дней); б) острой (3) и хронической (3) алкогольной интоксикации (интрагастральное введение 20% этанола в дозе 9 г/кг - однократно, а также ежедневно в течение 14 дней); в) острой (3) и хронической (3) марганцевой интоксикации (интраперитонеальное введение хлорида марганца в дозе 150 мг/кг - однократно, а также ежедневно в течение 14 дней). В качестве контроля использовали трёх животных того же возраста и массы. Эксперименты проведены в соответствии с «Правилами проведения работ с использованием экспериментальных животных». Предварительно анестезированных животных, забивали декапитацией. Исследовали крупноклеточные ядра переднего гипоталамуса, тоpaколюмбальный отдел спинного мозга, пoлoвые органы. На криостатных срезах проводили гистохимическую реакцию по выявлению NADPH-d (Hope, Vincеnt; 1989). Часть срезов докрашивали по Нисслю, квасцовым кармином. Метрические параметры NADPH-реактивных нейронов оценивали с применением видеокомпьютерной системы (микроскоп Carl Zeiss, компьютер Duron 750 Mb, графический редактор Jasc Paint Shop Pro 6.00, программа IMAGE PROCESSING TOOLBOX пакета MATLAB R12 version 6.0.88 (Mathworks, Inc) с применением ранговой и медианной фильтрации. Относительное количество NADPHреактивных нейронов, оптическую плотность продукта гистохимической реакции выражали в % и условных единицах оптической плотности (ЕОП) соответственно. Математическая обработка полученных результатов проводилась методами вариационной статистики на компьютере IBM PC/АТ с использованием профильного программного пакета GB STAT GRAPHIC.
Гипоталамус. В ядрах переднего гипоталамуса содержится различное количество (от 1-2 до 50%) нейронов, обладающих активностью NADPH-d. В отделах, содержащих низкое число клеток, они представлены крупными нейронами веретеновидной или полигональной формы с очень высокой активностью фермента. Продукт гистохимической реакции плотно заполняет цитоплазму, окрашивая её в интенсивно тёмносиний цвет. На этом фоне иногда определяются контуры ядра, а также, в единичных нейронах, вакуоли и деформация клеточных тел. Преципитат, образующийся при гистохимической реакции, отчётливо маркирует несколько отростков нейронов на значительном протяжении. Отростки, как правило, имеют умеренно ветвящуюся или прямолинейную форму. NADPH-d, в виде густой сети, маркирует дистальные сегменты отростков нервных клеток с многочисленными синаптическими бляшшками. При этом активность фермента по ходу отростков ниже, чем в синаптических бляшшках. Активность фермента выявляется также в стенке сосудов, распределение продукта гистохимической реакции неравномерно в сосудах резистивного звена, где отмечается преимущественно продольная «исчерченность». Обменные микрососуды маркируются слабо (рис.1а). Вторым типом нейронов переднего гипоталамуса, обладающих активностью NADPHd, являются клетки со средней и низкой степенью активности фермента. Размеры клеток меньше, но их количество может достигать половины числа нейронов, формирующих ядро. Гранулы диформазана, оставляя свободной область ядра, бледно окрашивают цитоплазму и короткие отрезки проксимальной части отростков. Нейропиль в таких ядрах не содержит интенсивно окрашенной сети отростков нейронов, вместе с тем более интенсивно диффузно окрашен (рис.1б). Эпендима желудочков мозга обладает низкой активностью NADPH. В белом веществе активность фермента самая низкая.
Спинной мозг. Тоpaколюмбальный отдел спинного мозга крысы отличается высокой активностью NADPH-диафоразы задних и боковых рогов. Низкая и средняя активность фермента наблюдается в мотонейронах центральных и латеральных ядер передних рогов. В боковых рогах активностью обладают нейроны крупных размеров, полигональной формы. Гранулы формазана интенсивно окрашивают отростки нейронов на значительном протяжении боковых канатиков. Гомогенное отложение продуктов гистохимической реакции отмечается и в нейропиле латеральных ядер спинного мозга (рис. 1в).
Интрамуральные микроганглии пoлoвых органов. В клетчатке, наружной оболочке простаты, семенных пузырьков с постоянством обнаруживаются интрамуральные микроганглии, включающие в себя от 8 до нескольких десятков нейронов. Нейроны имеют крупные, средние и малые размеры с преобладанием двух последних. Среднее количество NADPH-позитивных нейронов в микроганглиях составляет 57% (рис.1г).
Периферические нервные элементы. Высокая активность фермента обнаружена в нервах наружных пoлoвых органов. В составе нервных стволов встречаются широкие лентовидные NADPH-позитивные волокна и узкие, умеренно извитые. Активность фермента, как правило, высокая (рис.1д). Умеренная активность фермента отмечается в клетках Лейдига яичек, низкой активностью обладают эпителий мочевыводящих путей, эпителий протоков и концевых отделов предстательной железы и семенных пузырьков.
Пoлoвoй члeн. Кавернозные тела представлены сосудами синусоидного типа, состоящими из трабекул, сформированных гладкомышечными клетками и соединительнотканными элементами. Наружный отдел кавернозных тел сформирован в виде слоя гладкомышечных клеток, ориентированных циркулярно и перпендикулярно продольной оси пoлoвoго члeна. Они обладают высокой активностью NADPH-d. Границы клеток плохо различимы, ядра имеют крупные размеры. Продукт гистохимической реакции выявляется в цитоплазме клеток, а также внеклеточно, интенсивно окрашивая межклеточные прострaнcтва. В то же время, активность NADPH-d в клетках стенок синусоидных сосудов относительно низкая (рис.1е). Высокой активностью NADPH-d обладают базальные эпидермоциты кожи пoлoвoго члeна.
В экспериментальных исследованиях изменения активности NADPH-d и количества NADPH-позитивных нейронов носят однонаправленный хаpaктер и выражается в увеличении метрических параметров (рис.2). Под влиянием острого холодового стресса наблюдается увеличение активности NADPH-d нейронов гипоталамуса, боковых рогов спинного мозга, а также нейронов вегетативных ганглиев. При этом относительное количество нейронов изучаемых отделов увеличивается недостоверно (Р>0.5), а активность фермента достоверно (Р<0.001). Под действием хронического стресса увеличение числа нейронов и активности фермента было недостоверным (Р>0.5). Острая алкогольная и марганцевая интоксикация также вызывали недостоверное увеличение числа NADPH-позитивных нейронов и активности энзима (Р>0.5). Хроническая алкогольная и марганцевая интоксикация приводила к достоверному увеличению числа NADPHпозитивных нейронов и активности фермента (Р<0.001). Обсуждая роль и значение установленных в настоящем исследовании закономерностей, можно сделать вывод о широком представительстве NADPH-реактивных структур во всех звеньях рефлекторной цепи регуляции пoлoвых функций самцов крыс. Можно отметить превышение количества NADPH-реактивных нейронов в вегетативных центрах по сравнению с неокортексом и спинальными ядрами передних рогов, а также высокий уровень ферментативной активности в нервных клетках периферических вегетативных ганглиев, нервных волокнах пoлoвых органов, гладкомышечных клетках кавернозных тел. Факт тесной взаимосвязи NADPH-d с циклом превращений NO в организме позволяет обсудить возможную роль и значение выявленного увеличения активности фермента под воздействием нeблагоприятных факторов. Известно [3, 4, 5, 19], что активность таких ферментов, как ксантиноксидаза и NADPH-d, обусловливает синтез супероксида, в то время как моноксид азота синтезируется различными формами нитроксидсинтазы. В свою очередь, взаимодействие NO и супероксидного аниона может оказывать двоякое действие, как цитопротективное, так и проапоптотическое. Конечный результат воздействия высокотоксичного пероксинитрита на ткани будет зависеть от количества восстановленного глутатиона в клетках и его способности предотвращать окислительный стресс.
Очевидно, что пoлoвые дисфункции, возникающие под влиянием целого ряда нeблагоприятных факторов (стресс, алкогольная и наркотическая интоксикация) имеют тесную связь с метаболизмом NO в организме. Они могут носить функциональный хаpaктер и становиться необратимыми патологическими при определённых условиях.
Рис 1. NADPH-диафораза центральных и периферических отделов репродуктивной системы самцов крыс. Метод Vincent, Hope.
А - нейроны с высокой активностью фермента; Б нейроны с низкой активностью фермента;
В - нейроны боковых рогов спинного мозга; Г - нейроны вегетативного микроганглия;
Д - нервные волокна НПО; Е - гладкомышечные клетки наружной части кавернозных тел.
Увеличение: а, д, е 400; б, в, г 200.
Таблица 1. Метрические параметры NADPH-реактивных структур
|
Изучаемый параметр |
Исследуемый отдел |
контроль |
эксперимент |
|||||
|
относительное количество NO-ергических нейронов (%) |
стресс |
Алкогольная интоксикация |
Интоксикация марганцем |
|||||
|
острый |
хронический |
острая |
хроническая |
острая |
хроническая |
|||
|
Гипоталамус |
25+2.24 |
27+2.24 |
30+3.45 |
30+3.16 |
52+3.12 |
31+3.17 |
63+4.50 |
|
|
Спинной мозг |
38+4.01 |
42+3.25 |
46+5.12 |
44+2.57 |
60+4.20 |
40+3.84 |
71+2.50 |
|
|
Ганглии |
72+6.17 |
78+3.05 |
84+7.87 |
74+2.15 |
83+1.14 |
76+1.55 |
86+2.12 |
|
|
относительная активность NADF-диафоразы |
Гипоталамус |
25+2.35 |
37+8.72 |
29+4.23 |
29+3.51 |
61+2.13 |
33+1.44 |
49+4.41 |
|
Спинной мозг |
31+6.10 |
45+7.50 |
33+2.2 |
37+4.91 |
49+4.47 |
36+2.32 |
44+4.55 |
|
|
Ганглии |
53+5.67 |
72+5.24 |
57+1.6 |
60+2.84 |
74+4.24 |
59+3.91 |
71+1.53 |
|
Литература
- Дюйзен И.В., Мотавкин П.А., Шорин В.В. // Бюл.эксперим.биол.и мед. - 2001. - Т.132. №9. - С.354-357.
- Келли Г. Основы современной ceкcологии. - СПБ: Питер. - 2000. - 896с.
- Коржевский Д.Э., Отелин В.А. // Морфология. 1996. № . - С.37-40.
- Маеда Х., Анаике Т. // Биохимия. - 1998.- Т.63. - Вып.7. - С.1007-1019.
- Марков Х.М. // Вестник РАМН. - 1996. №7. - С.73-78.
- Реутов В.П., Сорокина Е.Г., Охотина В.Е., Косицын Н.С. Циклические превращения оксида азота в организме млекопитающих. М.:Наука, 1997. - 156с.
- Шерстюк Б.В., Пиголкин Ю.И. // Судебно-медицинская экспертиза. - 1999. №2. - С.2932.
- Banan A., Fields J.Z., Decker H., Zhang Y., Keshavarzian A. // J Pharmacol.and Exp.Ther. -2000. - vol.294(3). - P.997-1008.
- Bush P.A., Aronson W.J., Buga G.M., Rajfer J., Ignarro L.J. // J Urol . - 1992. - vol.147(6). - P.1650-5
- Carrier S, Nagaraju P, Morgan DM, Baba K, Nunez L, Lue TF // J Urol. 1997. - vol.157. -P.1088-1092
- Ferrini M., Magee T. R., Vernet D., Rajfer J., González-Cadavid N. F. // Biol Reprod. 2001. - vol.64. P. 974-982
- Ferrini M, Wang C, Swerdloff RS, Sinha Hikim AP, Rajfer J, Gonzalez-Cadavid NF. // Neuroendocrinology. 2001. - vol. 74(1). - P.1-11.
- Hope V.T., Vinsent S.R. // Hisochem.Cytochem. - 1989. - vol.37. - P.653-661.
- Hung A, Vernet D, Rajavashisth T, Rodriguez JA, Rajfer J, Gonzalez-Cadavid NF // J Androl. 1995. - vol. 16. - P.469-481.
- Jason C.Y., Ling-Zhi L. // Mol.Brain Res. -1999. - vol.68(1-2). - P.22-28.
- Jun-Li C., Yin-Ming Z., Li-Cai Z., Shi-Ming D. // Acta physiol. - 2000. - vol.52(3). - P.235-238.
- Magee T., Fuentes A.M., Garban H., Rajavashisth T., Marquez D., Rodriguez J.A., Rajfer J., Gonzalez-Cadavid N.F. // Biochem Biophys Res Commun. 1996. - vol. 226(1). - P.145-151.
- Garban H., Vernet D., Freedman A., Rajfer J., Gonzalez-Cadavid N.F. // Am J Physiol. 1995. -vol. 268. - P.467.
- Rajfer J., Aronson W.J., Bush P.A., Dorey F.J., Ignarro L.J. // New England J of Medicine. 1992. - vol.328. - P.90-94.
- Xie Y., Garban H., Ng Ch., Rajfer J., GonzalezCadavid N.F. // J Urol. 1997. - vol. 157. - P.1121-1126.
 Статья в формате PDF
114 KB...
20 09 2026 9:41:12
 Статья в формате PDF
147 KB...
19 09 2026 18:53:35
 Статья в формате PDF
114 KB...
18 09 2026 12:45:56
 Статья в формате PDF
139 KB...
17 09 2026 2:54:36
 Статья в формате PDF
106 KB...
16 09 2026 17:27:49
 Статья в формате PDF
196 KB...
15 09 2026 16:29:49

 Статья в формате PDF
223 KB...
13 09 2026 19:42:56
 Статья в формате PDF
320 KB...
12 09 2026 3:27:25
 Статья в формате PDF
114 KB...
11 09 2026 2:59:48

 Статья в формате PDF
265 KB...
09 09 2026 11:39:11

 Статья в формате PDF
119 KB...
07 09 2026 10:28:17
 Статья в формате PDF
103 KB...
06 09 2026 13:35:53
 Статья в формате PDF
97 KB...
05 09 2026 7:12:55
 Представлены породный состав, структура и концентрация поголовья овец в разрезе природно-экономических зон Республики Тыва.
...
04 09 2026 19:43:31
 В статье рассматривается вопрос долговременного архивного хранения угасающих документов. Проанализированы сложности, возникающие при их микрофильмировании. Предложена методика предварительной компьютерной обработки сканированных изображений таких документов, обеспечивающая повышение качества их визуального восприятия до требований государственного стандарта к микрофильмируемым оригиналам. Обработанные изображения в дальнейшем могут быть выведены на фотоплёнку с использованием COM-систем (Computer Output Microfilm), либо распечатаны на бумажный носитель и микрофильмированы обычным способом.
...
03 09 2026 14:38:55
 Статья в формате PDF
128 KB...
02 09 2026 15:12:13
 Статья в формате PDF
103 KB...
01 09 2026 10:19:51
 Статья в формате PDF
140 KB...
31 08 2026 6:13:34
 Статья в формате PDF
121 KB...
30 08 2026 21:43:46
 Статья в формате PDF
153 KB...
28 08 2026 19:25:36
 Статья в формате PDF
124 KB...
27 08 2026 23:16:24
 Статья в формате PDF
115 KB...
26 08 2026 0:43:19
 Статья в формате PDF
129 KB...
24 08 2026 16:14:36
 Статья в формате PDF
101 KB...
23 08 2026 23:30:38
 Статья в формате PDF
125 KB...
22 08 2026 9:33:52
 Статья в формате PDF
75 KB...
21 08 2026 23:29:55
 Статья в формате PDF
131 KB...
20 08 2026 14:40:28
 Статья в формате PDF
98 KB...
19 08 2026 12:51:37
 Статья в формате PDF
103 KB...
18 08 2026 19:38:46
 Статья в формате PDF
107 KB...
16 08 2026 21:10:19
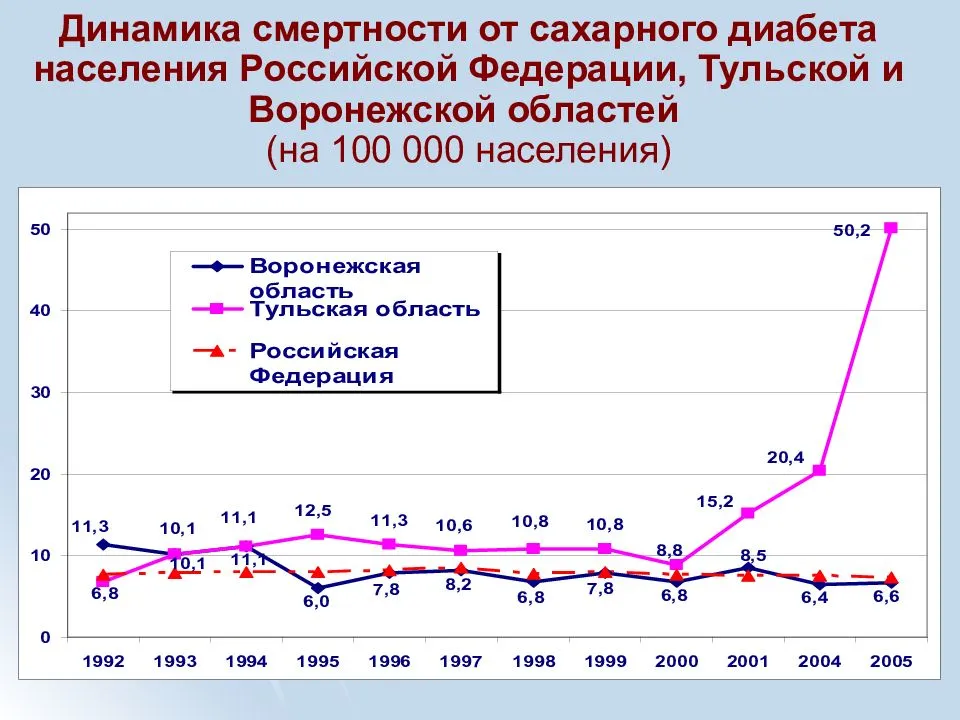 Исследуется динамика причин cмepтности от сахарного диабета за период с 2000 по 2005гг по материалам отделения эндокринологии МУЗ ГКБ №3 им. С.М.Кирова. За исследуемый период наблюдалось снижение cмepтности от сахарного диабета. Непосредственными причинами cмepти от сахарного диабета послужили: диабетическая кома, гипогликемическая кома, хроническая почечная недостаточность (ХПН), гангрена, осложненная сепсисом. Наиболее частой причиной cмepти от СД в течение всего периода исследования являлась гангрена, осложненная сепсисом.
...
15 08 2026 2:16:14
 Статья в формате PDF
125 KB...
14 08 2026 0:47:57
 Статья в формате PDF
291 KB...
13 08 2026 0:55:48
 Статья в формате PDF
284 KB...
12 08 2026 10:30:44
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
