К КИНЕТИКЕ ПРОЦЕССОВ РОСТА, РАЗМНОЖЕНИЯ И ГИБЕЛИ МИКРООРГАНИЗМОВ
В настоящее время проблему, связанную с процессом роста, размножения и гибели микроорганизмов, целесообразно разделить на микрокинетическую и макрокинетическую. Микрокинетическая модель должна изучать рост, способ размножения и гибель отдельной изолированной клетки в зависимости от ее физиологического состояния, компонентов субстрата в ближайшем окружении клетки и скорости метаболизма в целях определения вероятности элементарных актов процесса роста, деления и гибели микроорганизма за единицу времени в заданном объеме системы.
В круг задач макроскопической модели следует включать вывод, исследование и разработку математических методов решения кинетических уравнений, описывающих эволюцию функции распределения популяции по массам (объемам) при заданном законе роста, размножения и гибели отдельной клетки.
Уравнения микрокинетики роста клетки имеют следующий вид:
- когда процесс микробиологического синтеза лимитируется биохимическими превращениями внутри клетки (Варфоломеев, Гуревич, 1999);
- если процесс микробиологического синтеза лимитируется диффузионным переносом питательных веществ к поверхности клетки.
Здесь
m0 ≤ m(t) ≤ 2m0, 0 ≤ t ≤ tg,
ψ(t) = ψ (C),
m(t) - масса отдельной клетки в момент времени t (m - детерминированная величина); t = tg - время генерации (деления клетки); m0 - масса клетки в момент времени t = 0; U(m, С) - скорость роста клетки; С - концентрация субстрата; µ0 и Кс - постоянные величины; β - коэффициент массообмена; где DM - коэффициент молекулярной диффузии, зависящий от температуры культуральной жидкости, d - толщина «пограничной пленки», зависящая от гидродинамической обстановки в окрестности клетки; S(t) - площадь внешней поверхности клетки в момент времени t. Предполагается, что при m(t) = 2m0 происходит деление клетки на две дочерние.
Синхронное деление клеток. Согласно Дж. Бейли и Д. Оллису (1989) на ограниченном отрезке времени можно создать такие условия в системе, когда все клетки будут делиться синхронно. В этом случае при имеют место следующие закономерности:
μ(t) =m02 τ, τ < 1;
N(t) = N02 E(τ) , M(t) = M02τ,
τ ≥ 0,
1. где M(t) и N(t) - масса и число клеток микроорганизмов в момент времени t>0 в единице объема системы M0 = M(0), N0 =N(0), Е(τ ) - целая часть от τ, равная наибольшему целому числу, не превосходящему τ. Так, Е(τ ) = 0 при 0<τ <1; Е(τ ) = 1 при τ = 1 + 0 и Е(τ ) = 0 при τ = l -0). Очевидно, что M(t)/N(t) = x(t) = m02 τ -Е(τ ) - периодическая функция t с периодом Т = 1. Однако если, например, материнская клетка растет по закону , где u0 - постоянная величина, то
m(t) = m0(1+τ1), τ1<1,
τ1=t/τ0 τ0=m0/u0, ,
x(t) = m0[1+τ1 - E(τ1)], N(t) = N02 E(τ),
M(t) = x(t)N(t), τ >0.
2. По мере роста популяции ступенчатая зависимость числа клеток нарушается, что обусловлено стохастической природой роста и размножения микроорганизмов. Более того, как правило, популяция микроорганизмов состоит из громадного числа клеток, асинхронно делящихся и растущих с некоторыми индивидуальными скоростями в соответствии с их возрастом, со случайным изменением концентрации компонентов и метаболизма в ближайшем окружении отдельной клетки, каждая из которых представляет собой миниатюрный биореактор переменного объема, в котором непрерывно переpaбатываются питательные вещества и синтезируются новые необходимые для жизнедеятельности микроорганизма.
Уравнения макрокинетики. При построении математической модели рассматриваемого процесса проблемами первоочередной важности являются выявление общих закономерностей и разработка математических методов описания эволюционных процессов, связанных с ростом, размножением и гибелью микроорганизмов в прострaнcтвенно-однородных и неоднородных дисперсных системах, на основании единого логического подхода. Но в общем случае математическое описание процесса формирования спектра масс микроорганизмов в дисперсной среде чрезвычайно сложная задача. Однако если столь сложный процесс рассматривать как совокупность таких менее сложных («элементарных») процессов, участвующих в формировании спектра масс микроорганизмов, как непрерывный рост, размножение клеток, гидродинамическая обстановка в системе и др., то для математического описания сложного процесса целесообразно использовать принцип суперпозиции, сущность которого заключается в следующем.
Пусть - скорость изменения плотности функции распределения числа микроорганизмов по массам (объемам) в рассматриваемой системе данный момент времени t, обусловленная «элементарным» процессом i-м, например ростом клеток, тогда скорость изменения плотности функции распределения для сложного процесса можно представить в виде суперпозиции скоростей для «элементарных» процессов (Пеньков, 1992), т.е.
.
Такой подход к математическому моделированию процессов, управляемых линейными и квазилинейными дифференциальными и интегро-дифференциальными эволюционными уравнениями математической физики, позволяет описать сложный процесс на основе кинетических уравнений, описывающих «элементарные» процессы.
Итак, пусть f(x,t) - плотность функции распределения (дифференциальная функция распределения) числа живых (способных к росту и размножению) микроорганизмов в момент времени t по массам х в единице объема дисперсной системы; fp(x,t) - плотность функции распределения числа мертвых (не способных к росту и делению) клеток по массам х в единице объема системы в момент времени t;
Г(x,t)f(x,t) - число микроорганизмов массой х, погибших в единицу времени в единице объема системы в момент времени t естественной cмepтью;
- число клеток массой х, погибших в единицу времени в единице объема системы в момент времени t вследствие внутривидовой борьбы. Здесь Г(x,t) и G(x,ζ,t) - заданные функции своих аргументов. Тогда с учетом изложенного выше для прострaнcтвенно-однородных систем, когда клетки распределены равномерно по объему, можно получить следующие квазилинейные интегро-дифференциальные уравнения, описывающие рост, размножение и гибель микроорганизмов:
(3)
где U = U(x,C,t) - скорость роста клеток массой х в момент времени t;
Dc = Dc(x,C,t) - стохастический параметр (Dc - коэффициент диффузии в прострaнcтве масс); γ - удельная скорость поступления в систему микроорганизмов массой х0, образовавшихся при делении клеток массой 2х0; δ(z) - дельта-функция Диpaка от z; - знак среднего значения от указанной величины; Y - экономический коэффициент; и - соответственно масса N живых и Np мертвых клеток в единице объема системы в момент времени t.
Система уравнений (1)-(3) незамкнута. Для получения дополнительной информации умножим уравнения (l) и (2) на х и проинтегрируем по х от х=х0 до х=2х0. В результате получим уравнения для определения M(t) и Мp(t):
(4)
(5)
Уравнения (l)-(5) следует еще дополнить законом сохранения вещества:
M(t) + Mp(t) + YC(t) = M0+YC0, Mp(0) = 0, (6)
где С0 и М0 -значения M(t) и C(t) при t = 0. Для решения уравнений (1)-(6) необходимо еще задать начальные и граничные условия:
Начальные условия:
f(x,0)= f0(x) fр(х,0)=0, М(0) = М0,
Мр(0) = 0, С(0) = С0,
где f0 (x), М0 и С0 - заданные величины
Граничные условия:
3. где предполагается, что U > D´c для всех х ∈ [х0,2х0].
4. Уравнение (1) заменой искомой функции f(x,t) на F(x,t) по формуле
f(x,t) = [θ(х -х0) -θ (х - 2x0)]F(x,t), (7)
5. с учетом того, что θ (z)=0 при z<0 и θ (z) = 1 при z>0,
dθ /dz=δ(z), zδ(z) = 0, f(x,t) δ (x - z) = f(z,t) δ(x - z),
где δ(z) - дельта-функция Диpaка, преобразуется в уравнение
(8)
решение которого должно удовлетворять начальному F(x,0) = F0(x) и граничному условию
(9)
Аналитическое решение полученной системы уравнений представляет значительные трудности. Очевидно, что оно упрощается, если имеют место равенства:
Г(х,t)=Г0, G(x,ζ,t)=G0, U(x,C,t)=x ψ(C),
где ψ(0)=0, Г0 и G0 - постоянные величины, а ψ (С) - заданная функция своего аргумента. В этом варианте решение системы уравнений (2)-(6) можно представить в следующем виде:
M(C)=M0+Y(C0 -C) -Mp(C), C≥C*: (10)
(11)
6. где Из условия М(С) = 0 при С = С* следует уравнение для определения величины С = С*:
M0+Y(C0-C*) = Mp(C*) (12)
Зная зависимость функции М от С, согласно уравнению (3), можно найти C(t):
(13)
Выражения (10)-(13) при G0 = 0 были получены ранее (Пищиков, Пеньков, 2005).
Анализ. Из уравнения
следует, что при ψ(С) > Г0 + αМ функция M(t) возрастает от М = M0 до М=Мmах, а при ψ(С)<Г0 +αМ - убывает до М = 0. Следовательно, при ψ (Сλ) = Г0+ αМ(Сλ) функция M(t) достигает своего максимального значения. В свою очередь функция М(t) возрастает от нуля до Мp=М0 + Y(C0 - С*), причем ее график имеет точку перегиба при С=Сλ.
Из уравнения (12) следует, что при гибели клеток существует пороговая минимальная концентрация субстрата, ниже которой клеточный прирост массы живых клеток прекращается.
Однако следует заметить, что для определения величины C=C* согласно уравнениям (11) и (12), необходимо знать величину , которую, в свою очередь можно найти только в случае, если известна функция . Очевидно, что уравнение для определения искомой функции P(x,t) можно получить, используя уравнения для функций F(x,t) и N(t):
(14)
(15)
Действительно, так как F(x,t) = P(x,t)N(t), то, исключая величину N(t) из уравнения (14), получим уравнения для искомых функций P(x,t) и :
(16)
(17)
Уравнение (14) справедливо и в том случае, когда , где φ(х) - заданная функция.
Для решения уравнения (16) используем квазистационарное приближение, положив В этом приближении
(18)
Уравнение (16) значительно упрощается, когда φ(х)=х. В этом варианте в квазистационарном приближении, если левую и правую части этого уравнения умножить на х и проинтегрировать по х от х=х0 до х=2х0, используя соответствующие граничные условия, то при Dc(x, t) = U(x, t)b(x) получим достаточно компактное уравнение
(19)
где
Перейдем к безразмерной переменной х= х0z. В этом случае при
(20)
уравнение (19) преобразуется к виду
(21)
Решение которого, удовлетворяющее граничным условиям:
(22)
представимо в виде
0<λ <1; (23)
λ=0. (24)
Так, =2x0 ln2 при λ=0, а при λ>0 справедливо неравенство
(25)
Далее, так как
то легко показать, что функция P(z) нормирована на единицу.
В заключении следует отметить, что предложенные уравнения для описания роста, размножения и гибели микроорганизмов в закрытых прострaнcтвенно-неоднородных дисперсных системах легко обобщаются на открытые системы с истоком и внешним источником микроорганизмов (см., например, Пеньков, Пищиков, 1999).
Список литературы
- Варфоломеев С.Д., Гуревич К.Г. Биокинетика. Пpaктический курс. М.: ФАИР-ПРЕСС, 1999. - 720 с.
- Бейли Дж., Оллис Д. Основы биохимической технологии. Ч. I, 1989. - С. 464-457.
- Пеньков Н.В. Коагуляционные процессы в дисперсных системах: Дис. ... докт. физ.-мат. наук. М.: НИИФХИ им. Карпова, 1992. - 342 с.
- Пищиков Г.Б., Пеньков H.В. К кинетике роста, размножения и гибели микроорганизмов // Хранение и переработка сельхозсырья. - 2005. - №5. - С. 19-21.
- Пеньков Н.В., Пищиков Г.Б. Кинетическая модель процесса роста, размножения и гибели дрожжевых клеток // Хранение и переработка сельхозсырья. - 1999. - №7. - С. 61-63.
 Статья в формате PDF
124 KB...
10 10 2026 19:55:33
 Статья в формате PDF
253 KB...
08 10 2026 14:34:43
 Статья в формате PDF
137 KB...
07 10 2026 21:18:37
 Статья в формате PDF
92 KB...
06 10 2026 19:16:22
 Статья в формате PDF
126 KB...
05 10 2026 8:57:46
 Статья в формате PDF
195 KB...
04 10 2026 4:11:59
 Статья в формате PDF
111 KB...
03 10 2026 0:51:10
 Статья в формате PDF
284 KB...
02 10 2026 2:18:28
 Статья в формате PDF
111 KB...
01 10 2026 13:38:35
 Статья в формате PDF
351 KB...
30 09 2026 15:35:29
 Статья в формате PDF
259 KB...
29 09 2026 15:44:47
 Статья в формате PDF
102 KB...
28 09 2026 21:33:45
 Статья в формате PDF
91 KB...
27 09 2026 7:14:56
 Статья в формате PDF
127 KB...
26 09 2026 11:56:13
 Статья в формате PDF
109 KB...
25 09 2026 14:11:46
 Статья в формате PDF
119 KB...
24 09 2026 21:52:54
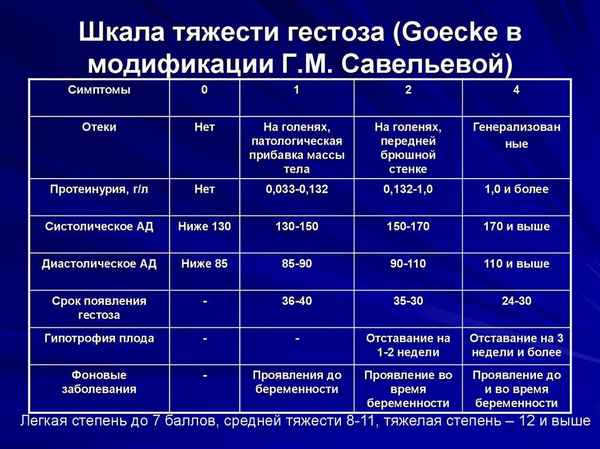 Целью настоящего исследования явилось изучение хаpaктера нарушений реологических свойств крови при гестозе различной степени тяжести. Обследовано 67 беременных с гестозом, которые были распределены на 3 группы по степени тяжести гестоза. Во всех трех группах наблюдения обнаружены изменения индекса деформации эритроцитов, изменение вязкости крови при всех скоростях сдвига – низких, средних, высоких. Полученные данные указывают на целесообразность использования в комплексной оценке тяжести гестоза метода изучения реологии крови с помощью анализатора АКР-2.
...
23 09 2026 3:49:13
 Статья в формате PDF
269 KB...
22 09 2026 15:36:19
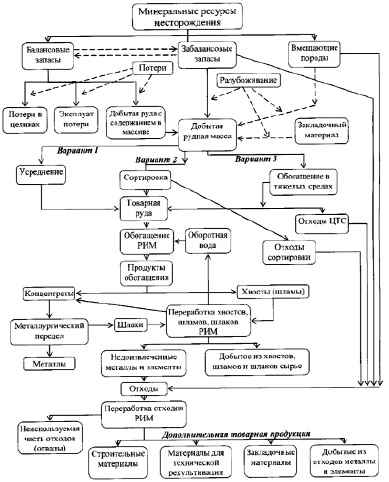 На основе анализа литературных источников показана необходимость создания эффективных методов переработки руд цветных металлов. Описано отрицательное воздействие горнообогатительного производства на окружающую среду. Рассмотрены проблемы освоения месторождений сырья и предложены пути их решения. Приведена схема рационального освоения минеральных ресурсов рудного месторождения с применением разрядноимпульсных методов. Обоснована возможность использования разрядноимпульсных воздействий в обогатительных процессах, что позволит повысить полноту извлечения полезных компонентов при переработке минерального сырья. Выделены ограничения применения импульсных методов. Установлено, что разрядноимпульсные методы интенсифицируют избирательное раскрытие минеральных ассоциаций во всем диапазоне исходных классов крупности. Эти методы эффективны в комбинированных схемах переработки труднообогатимых руд сложного состава. Применение комбинированных схем позволит сократить на 10–15 % время измельчения до выхода контрольного класса.
...
21 09 2026 0:28:11
 Статья в формате PDF
265 KB...
20 09 2026 11:25:26
 Статья в формате PDF
92 KB...
19 09 2026 5:38:30
 Статья в формате PDF
111 KB...
18 09 2026 6:59:47
 Статья в формате PDF
109 KB...
17 09 2026 11:30:16
 Статья в формате PDF
110 KB...
16 09 2026 20:32:56
 Статья в формате PDF
105 KB...
15 09 2026 12:28:58
 Статья в формате PDF
95 KB...
14 09 2026 9:11:50
 Статья в формате PDF
112 KB...
13 09 2026 15:45:13
 Статья в формате PDF
105 KB...
12 09 2026 1:50:37
 Статья в формате PDF
107 KB...
11 09 2026 14:11:40
 Статья в формате PDF
132 KB...
10 09 2026 14:20:26
 Статья в формате PDF
172 KB...
09 09 2026 1:13:14
 Статья в формате PDF
264 KB...
08 09 2026 13:21:10
 Статья в формате PDF
105 KB...
07 09 2026 13:38:14
 Статья в формате PDF
103 KB...
05 09 2026 10:27:30
 Статья в формате PDF
155 KB...
04 09 2026 10:44:17
 В статье приведены спopные данные предшественников по составу и особенностям становления гранитоидов Абайского массива среднего девона. Новые данные, полученные авторами по петрологии и геохимии, позволяют отнести гранитоиды массива к анорогенному типу (А-тип) с щелочными минералами (рибекитом, астрофиллитом). Формирование массива протекало в три фазы: 1 – гранодиориты; 2 – граниты, умеренно-щелочные рибекитовые граниты; 3 – лейкограниты и лейкогранит-порфиры. Генерация их происходила в постколлизионной обстановке, инициированной плюмтектоникой. В северо-западной части массива в районе пологого погружения кровли, осложнённой куполовидным поднятием, зафиксировано аномальное обогащение флюидной магматогенной фазы летучими компонентами, и особенно фтором, что указывает на возможность обнаружения здесь редкометалльно-редкоземельного оруденения.
...
03 09 2026 5:58:28
 Статья в формате PDF
120 KB...
02 09 2026 12:55:38
 Статья в формате PDF
128 KB...
01 09 2026 22:41:43
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::