Моноаминергические механизмы регуляции физиологической беременности

Целью настоящего исследования является комплексная оценка изменений моноаминергического фона в репродуктивной системе самок белых крыс и в структурах фето-плацентарного комплекса в динамике нормальной беременности.
Исследование проведено на 40 самках белых крыс массой 170-200г. Работа включает две серии исследований:1серия - исследование уровня биогенных моноаминов в репродуктивной системе небеременных самок белых крыс в раннем постовуляторном периоде; 2 серия - изучение уровня моноаминов в репродуктивной системе самок белых крыс на 1-ой, 2-ой и 3-ей неделях физиологической беременности.
Момент овуляции у небеременных крыс и наступление беременности определяли методом микроскопического исследования цитологической картины влагалищных мазков.
У животных данных групп исследовали содержание и соотношение адреналина, норадреналина, дофамина, гистамина, серотонина и продукта его окислительного дезаминирования - 5-оксииндолуксусной кислоты в центральном (гипоталамусе) и периферическом (яичниках и матке) отделах репродуктивной системы, крови и структурах фето-плацентарного комплекса (хорио-эмбриональном комплексе, плаценте, мозге, сердце и кишечнике плода). Дополнительно исследовали содержание адреналина, норадреналина, дофамина и ДОФА в надпочечниках.
Для количественной оценки отдельных фpaкций моноаминов в исследуемом биологическом материале использовали современные флюорометрические методы. Интенсивность флюоресценции опытных образцов измеряли на спектрофлюориметре MPF -4 «Хитачи».
Полученные в нашей работе результаты выявили закономерные изменения моноаминов в центральном и периферических звеньях репродуктивной системы беременных самок крыс и структурах фетоплацентарного комплекса, соответствующие срокам развития беременности. Эти изменения носят выраженный фазный хаpaктер и отражают эволюционно запрограммированный процесс поэтапного развития беременности и формирования плода. На основании анализа содержания и соотношения фpaкций моноаминов в гипоталамусе, яичниках и матке самок белых крыс на 1-ой, 2-ой и 3-ей неделях физиологической беременности нами были выделены три качественно различные фазы изменений моноаминов в женской репродуктивной системе в динамике гестационного процесса.
Первая фаза, соответствующая начальному периоду беременности, определяется нами как фаза периферической или эффекторной моноаминовой активности. В этот период (2 - 4 день гестации) именно в эффекторном звене репродуктивной системы, в отличие от «управляющих» звеньев, наблюдаются четко выраженные качественные и количественные изменения моноаминового фона. Основными закономерностями эффекторной фазы моноаминовой регуляции беременности являются: повышение суммарной концентрации моноаминов в матке крыс за счет дофамина, гистамина со сменой серотонинергической доминанты, хаpaктерной для небеременных животных, на дофаминергическую; рост концентрации 5-оксииндолуксусной кислоты в органе, свидетельствующий об усилении метаболического оборота серотонина; снижение уровня адреналина и гистамина в крови на фоне усиления катехоламиногенеза в надпочечниках.
Моноаминовый фон хорио-эмбрионального комплекса в начале гестации хаpaктеризуется высоким содержанием всех фpaкций моноаминов с преобладанием трофотропных (серотонина и гистамина).
Вторая фаза, соответствующая середине беременности, названа нами фазой генерализации моноаминовой активности в репродуктивной системе и хаpaктеризуется усилением моноаминового фона во всех звеньях репродуктивной системы беременных самок крыс за счет прогрессивного роста концентрации дофамина; формированием внутрисистемной дофаминовой доминанты; десимпатизацией периферического отдела репродуктивной системы за счет снижения уровня адреналина и норадреналина в матке, яичниках и крови и торможения катехоламиногенеза в надпочечниках; повышением содержания серотонина и гистамина в крови на фоне ослабления процессов метаболической инактивации серотонина в яичниках и матке.
В структурах фето-плацентарного комплекса (плаценте и мозге плода) на 2-ой неделе беременности также регистрируется высокая концентрация дофамина на фоне низкого уровня норадреналина и следовых количеств адреналина. Среди трофотропных фpaкций моноаминов преобладает серотонин. В моноаминовом спектре молодой плаценты и фетального мозга, также как и во всех отделах материнской репродуктивной системы, доминирует дофамин.
Третья фаза - фаза централизации моноаминергической активности в системе в предродовом периоде. Хаpaктерными признаками этой фазы являются: выраженный рост концентрации норадреналина в гипоталамусе; трехкратное повышение концентрации норадреналина в матке беременных крыс с параллельным снижением уровня дофамина в генеративных органах и крови; повышение периферического симпатического потенциала за счет роста концентрации адреналина в крови и надпочечниках; увеличение удельного веса норадреналина в катехоламиновых спектрах периферических отделов репродуктивной системы; внутрисистемное ослабление процессов метаболической инактивации серотонина на фоне снижения уровня гистамина в матке и крови.
В плаценте беременных крыс в предродовом периоде отмечается снижение уровня дофамина и рост концентрации гистамина; содержание серотонина не изменяется по сравнению с серединой беременности, однако пpaктически отсутствует 5-оксииндолуксусная кислота. Аналогичные изменения моноаминов отмечены в мозге плодов крыс в этот период.
Известно, что изменения свойств женского организма во время беременности связаны с возникновением гестационной доминанты, особенностью которой является последовательная смена доминантных установок, специфичных для каждого периода беременности. На начальном этапе беременность контролируется в большей степени местными регуляторными механизмами: активностью желтого тела, бластокининами матки, стероидами и другими биологически активными веществами, в том числе и моноаминами. Повышение концентрации моноаминов в матке крыс в первые дни беременности направлено на поддержание автономных реакций саморегуляции процессов имплантации оплодотворенной яйцеклетки и дифференцировки клеточных элементов хорио-эмбрионального комплекса. Этот первичный сдвиг моноаминовой активности в женской репродуктивной системе в сторону эффекторного звена отражает ее поэтапное «вхождение» в гестационный процесс и является биологически целесообразным в плане экономизации эрго и трофотропных ресурсов материнского организма и его адаптации к новому функциональному состоянию.
Прогрессивное повышение к середине беременности суммарной концентрации моноаминов во всех отделах репродуктивной системы самок крыс и структурах фето-плацентарного комплекса, вызываемое генерализованным ростом дофаминовой активности, указывает, на наш взгляд, на «переход» гестационного процесса с местного на системный уровень регуляции и формирование общих механизмов, укрепляющих функциональную связь элементов гестационной системы мать - плацента - плод. Можно полагать, что дофамин является одним из ведущих нейрогумopaльных компонентов гестационной доминанты, обеспечивающей оптимальные для вынашивания и развития плода физиологические параметры гомеостаза.
Изменения моноаминового фона в репродуктивной системе крыс в конце 3-ей недели беременности направлены на завершение гестационного процесса и подготовку к родам. Определяющим моментом в этот период, на наш взгляд, является смена дофаминергической гестационной доминанты в гипоталамусе на норадренергическую, хаpaктерную для небеременных животных. Повышение уровня норадреналина в гипоталамусе крыс в предродовой период может быть обусловлено снижением функциональной активности серотонинергической системы, о чем свидетельствует низкий уровень 5-оксииндолуксусной кислоты, так как между серотонини норадренергическими системами мозга существуют реципрокные взаимодействия и, следовательно, этот механизм может участвовать в преобразовании моноаминового фона гипоталамуса крыс в конце беременности.
Таким образом, полученные результаты свидетельствуют о тесной функциональной связи моноаминергических систем регуляции с генеративной функцией женского организма. Каждая фаза изменений моноаминовой активности в гестационной системе является физиологически обоснованной и целесообразной с точки зрения обеспечения нормального процесса беременности, последовательного развития плода и родоразрешения.
 Статья в формате PDF
114 KB...
21 11 2026 19:31:26
 Статья в формате PDF
113 KB...
20 11 2026 19:14:42
 Статья в формате PDF
283 KB...
19 11 2026 9:12:22
 Статья в формате PDF
314 KB...
18 11 2026 10:58:15
 Статья в формате PDF
443 KB...
17 11 2026 23:23:28
 Статья в формате PDF
110 KB...
16 11 2026 21:31:36
 Статья в формате PDF
126 KB...
15 11 2026 16:36:11
 Статья в формате PDF
113 KB...
14 11 2026 1:37:16
 Статья в формате PDF
311 KB...
13 11 2026 19:38:55
 Статья в формате PDF
99 KB...
12 11 2026 15:26:29
 Статья в формате PDF
97 KB...
11 11 2026 13:29:22
 Статья в формате PDF
111 KB...
10 11 2026 12:24:52
 Статья в формате PDF
393 KB...
09 11 2026 13:35:16
 Статья в формате PDF
127 KB...
08 11 2026 16:28:49
 Статья в формате PDF
230 KB...
07 11 2026 0:41:20
 Статья в формате PDF
135 KB...
06 11 2026 13:24:12
 Статья в формате PDF
145 KB...
05 11 2026 3:26:32
 Статья в формате PDF
100 KB...
04 11 2026 22:11:21
 Статья в формате PDF
121 KB...
03 11 2026 13:54:54

 Статья в формате PDF
121 KB...
01 11 2026 1:35:34
 Статья в формате PDF
314 KB...
31 10 2026 21:43:17
 Статья в формате PDF
219 KB...
30 10 2026 7:49:45
 Статья в формате PDF
113 KB...
28 10 2026 12:47:19
 Статья в формате PDF
118 KB...
27 10 2026 13:38:12
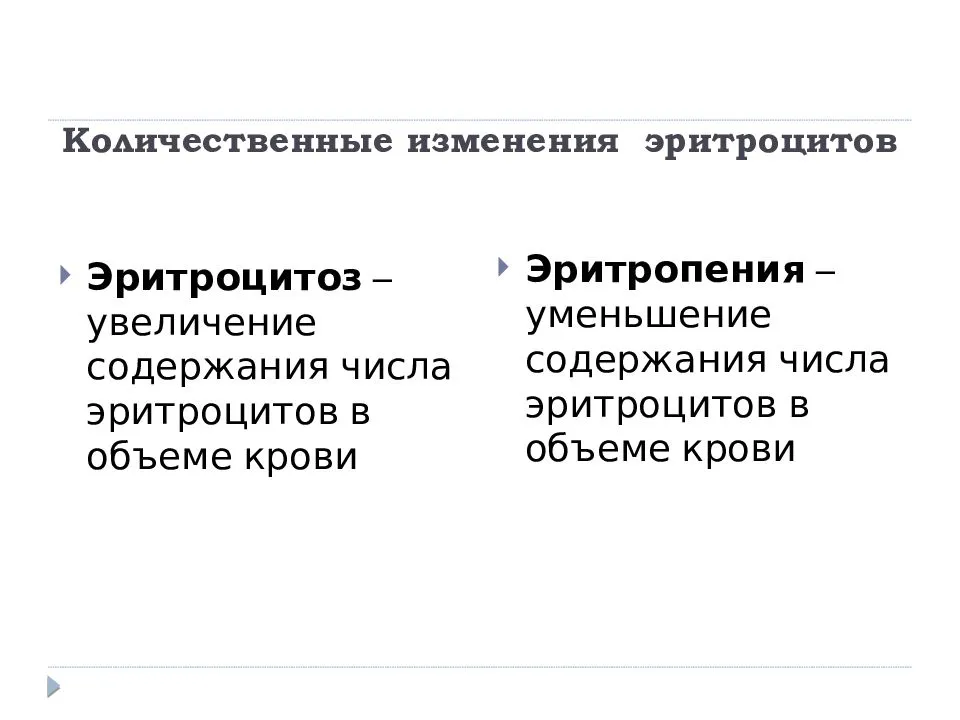 Изучено изменение количества эритроцитов и состояние их мембран при переезде студентов в новую местность и при адаптации к условиям обучения в вузе. Полученные результаты свидетельствуют о более выраженных качественных изменениях эритроцитов по сравнению с их количественным составом. Это выражается в изменении соотношении эритроцитов по стойкости: преобладание числа низкостойких эритроцитов у городских студентов и средне- и высокостойких – у приезжих, что является свидетельством большей выраженности компенсаторных реакций в группе приезжих студентов.
...
26 10 2026 13:52:24
 Статья в формате PDF
103 KB...
25 10 2026 2:24:49
 Статья в формате PDF
119 KB...
24 10 2026 21:37:59
 Статья в формате PDF
105 KB...
23 10 2026 14:26:16


 Статья в формате PDF
691 KB...
20 10 2026 20:52:35
 Статья в формате PDF
97 KB...
19 10 2026 16:59:12
 Статья в формате PDF
110 KB...
18 10 2026 17:59:51

 Статья в формате PDF
98 KB...
16 10 2026 13:36:19

 Статья в формате PDF
379 KB...
14 10 2026 15:54:27
 В работе впервые приведены данные по соотношению отдельных составных частей яиц японских перепелок, выращенных в новых суточных ритмах. В начале яйцекладки средний масса желтка у опытных птиц больше на 1,0 %, масса белка у контрольных больше на 1,04 % от общего веса яйца. Масса скорлупы у обеих групп в начале яйцекладки одинакова .У опытных птиц между весом яйца и весовыми долями желтка и белка установлена прямая коррелятивная связь. Между массами яйца и желтка –слабая (r = +0,335), между массами яйца и белка – тесная(r = +0,999), между массами желтка и белка(r = +0,549) – средняя корреляция.). Отношение белка к желтку у контрольных яиц больше на 0,08 %.
...
13 10 2026 3:41:32
Еще:
Поддержать себя -1 :: Поддержать себя -2 :: Поддержать себя -3 :: Поддержать себя -4 :: Поддержать себя -5 :: Поддержать себя -6 :: Поддержать себя -7 :: Поддержать себя -8 :: Поддержать себя -9 :: Поддержать себя -10 :: Поддержать себя -11 :: Поддержать себя -12 :: Поддержать себя -13 :: Поддержать себя -14 :: Поддержать себя -15 :: Поддержать себя -16 :: Поддержать себя -17 :: Поддержать себя -18 :: Поддержать себя -19 :: Поддержать себя -20 :: Поддержать себя -21 :: Поддержать себя -22 :: Поддержать себя -23 :: Поддержать себя -24 :: Поддержать себя -25 :: Поддержать себя -26 :: Поддержать себя -27 :: Поддержать себя -28 :: Поддержать себя -29 :: Поддержать себя -30 :: Поддержать себя -31 :: Поддержать себя -32 :: Поддержать себя -33 :: Поддержать себя -34 :: Поддержать себя -35 :: Поддержать себя -36 :: Поддержать себя -37 :: Поддержать себя -38 ::
